
— 조작된 공생세균의 계보에 관하여
1. 먼저, 이 논문은 “무기”가 아니다
2026년 9월 16일 PLOS Biology에 로잔대학교 Philipp Engel과 Yolanda Schaerli 그룹의 논문이 실렸다. 제목은 “An engineered bacterial symbiont maps micron-scale sugar gradients in the honeybee gut“(Chhun et al., 24(9):e3003997).
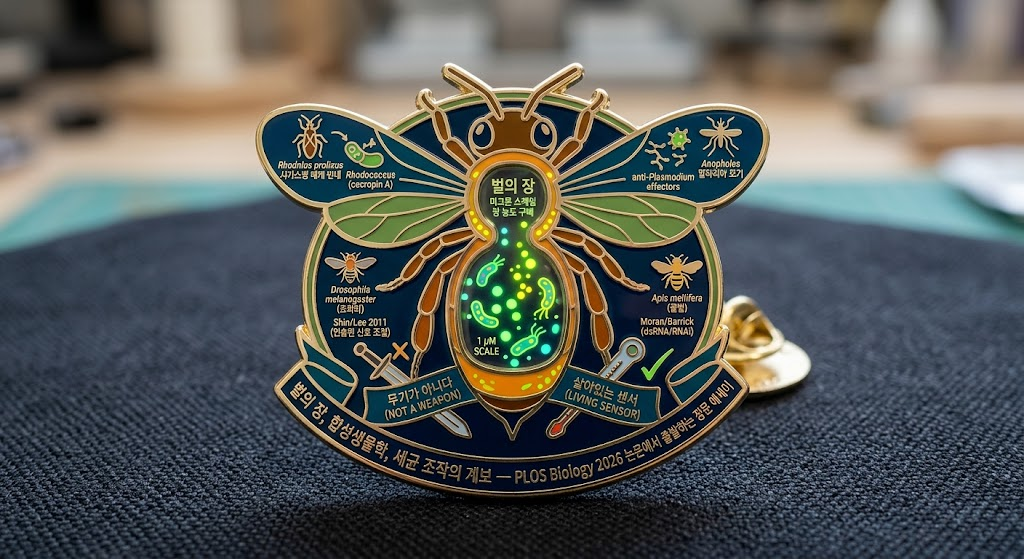
제목만 보고 “또 꿀벌 구하기용 GM 세균이구나” 하고 넘어가기 쉽다. 실제로 지난 몇 년간 꿀벌 장내세균 조작 뉴스는 대부분 응애를 죽이거나 바이러스를 막는 이야기였다. 그러나 이 논문은 그 계열이 아니다. 이것은 측정 도구 논문이다. 무기가 아니라 온도계다. 벌의 창자 안에 살아있는 형광 센서를 심어, 세균들이 실제로 어떤 화학적 환경에서 살고 있는지를 1 마이크로미터 해상도로 읽어낸 연구다.
이 구분이 왜 중요한가. 합성생물학이 생태계에 개입하는 방식에는 두 갈래가 있다. 하나는 바꾸는 것이고 하나는 읽는 것이다. 지난 30년의 곤충 공생세균 조작사는 압도적으로 전자에 치우쳐 있었다. 샤가스병을 막고, 말라리아를 막고, 응애를 죽이는 쪽으로. 그런데 정작 “우리가 개입하려는 그 장 내부는 어떻게 생겼는가”라는 질문은 놀라울 만큼 비어 있었다. 이 논문은 그 공백을 겨냥한다.
그래서 이 글은 이렇게 간다. 먼저 이 논문을 정독하고, 그다음 이 논문이 서 있는 두 개의 계보 — 꿀벌 공생세균 조작 프로그램과, 더 오래된 paratransgenesis 전통 — 을 따라 내려간다. 그리고 초파리 연구자로서 내가 늘 돌아오는 지점, 즉 “기전은 어디까지 규명되었는가”를 묻는다.
2. 논문 정독: 세균을 당(糖) 센서로 개조하기
문제 설정
꿀벌의 장내세균총은 이상할 정도로 단순하다. Martinson과 Moran 등이 2012년 PNAS에 보고한 바로는, 일벌 장에서 검출되는 세균 서열의 99% 이상이 단 8개 phylotype에 속한다. 포유류 장의 수백~수천 종과 비교하면 거의 실험실 조건에 가깝다. 배양 가능하고, 무균 벌을 만들 수 있고, 원하는 조합으로 재정착시킬 수 있다.
그런데 이 단순한 공동체조차 “어디서 무엇을 먹고 사는가”는 거의 알려진 바가 없었다. 장을 통째로 갈아서 질량분석을 하면 평균값은 나오지만 공간 정보가 사라진다. 미세전극은 밀리미터 해상도다. 질량분석영상(MALDI-MSI)도 통상 5–20 µm 수준이고, 조직 루틴에서는 50–200 µm까지 거칠어진다. 세균 한 마리의 크기가 1–2 µm인데, 세균이 경험하는 세계를 세균 열 마리 폭으로 뭉개서 보고 있었던 셈이다.
저자들의 해법은 우아하다. 세균 자신을 센서로 쓴다. 세균은 이미 그 자리에 살고 있고, 크기가 곧 해상도이며, 자기 니치를 교란하지 않는다.
균주 설계
대상은 Snodgrassella alvi wkB2ᵀ. 벌 회장(ileum) 벽에 biofilm을 이루는 핵심 공생균이고, 산소를 소비해 혐기 환경을 만드는 keystone 종이다. 숙주는 Apis mellifera carnica.
설계의 출발점이 재미있다. S. alvi는 원래 탄수화물을 수입·이용하는 유전자가 없다. 보통은 결함이지만, 센서 입장에서는 완벽한 백지다. 배경 신호가 0이다.
그래서:
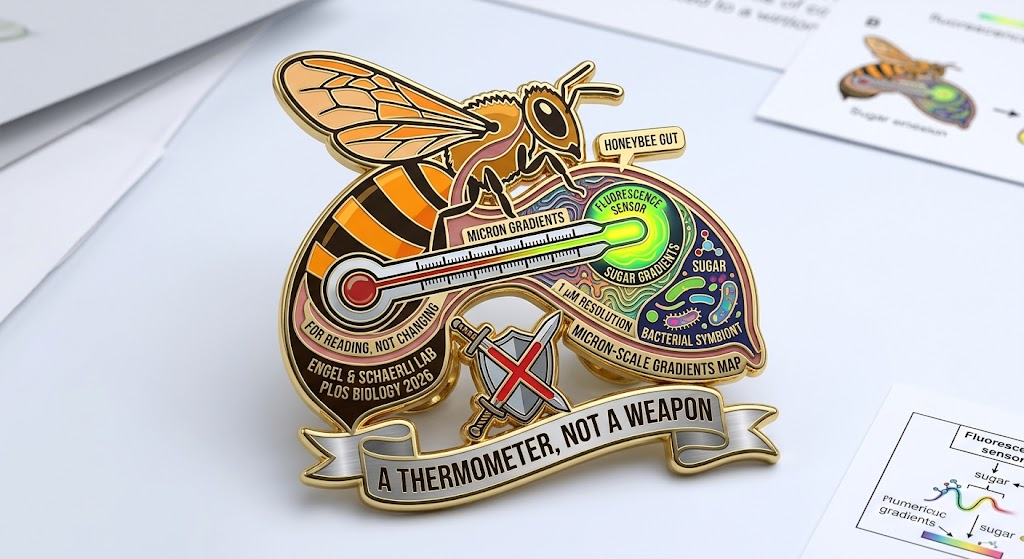
- 대장균 유래 아라비노스 수송체 AraE를 tetC 자리에 염색체 통합해 아라비노스를 “들여올” 능력만 부여.
- 대장균의 AraC–pBAD 조절계를 S. alvi에서 작동시키기 위해, pBAD의 AraC 결합부위(O1L·O1R·I1·I2)와 CP25 코어 프로모터를 섞은 합성 프로모터 pBAD25를 새로 만듦.
- AraE는 막단백질이라 과발현하면 세포에 독이다. 그래서 기존 CP25보다 70%, PA3보다 50% 약한 저강도 프로모터 CP6을 골라 최소한만 발현.
- 고부담 유전자를 안전하게 통합하기 위해 R6K 조건부 복제기점(pir⁺ 균주에서만 복제되는) 기반 suicide plasmid를 표준화. 대장균 안에서 araE가 복제되며 독성을 내거나 돌연변이가 쌓이는 걸 원천 차단.
- araC와 gfp는 각각 다른 플라스미드에 실었다. 다유전자 구조물을 한 플라스미드에 몰면 유전적으로 불안정해지기 때문.
최종 균주 ac02 = 염색체 CP6-araE + pTF-FC2 계열의 CP25-araC + RSF1010 계열의 pBAD25-gfp.
이 설계 하나하나가 “비모델 세균에서 합성회로를 돌린다는 것”의 실무적 난이도를 그대로 보여준다. 대장균에서 잘 도는 회로를 그냥 옮기면 거의 반드시 실패한다.
결과
시험관 검증(Fig 1). 아라비노스 농도에 용량 의존적 반응. 6,661 µM에서 최대 10.4배 형광 증가, 검출한계 6.7 µM(1.7배 신호, p<0.0001).
특이성(Fig 2). 리보스·자일로스에는 무반응, L-아라비노스에만 4.5배 반응. AraC의 고유 특이성이 그대로 살아있다는 뜻이다. 여기서 부수적으로 흥미로운 GC-MS 데이터가 나온다. 무균 벌의 장 아라비노스는 2,204.4 ± 1,071.1 µM인데, 정상 세균총 벌은 72.2 ± 16.4 µM. 미생물총이 아라비노스를 30배가량 먹어치우고 있다.
생체 내 정착(Fig 3). 단일 정착 벌 25마리 중 25마리(100%), 공동정착 23마리 중 22마리(95.6%)가 7일차에 센서를 보유. 그리고 핵심 발견이 여기 있다.
회장을 길이 방향으로 나눠보면(전·중·후) 아라비노스 신호가 균일하다(p=0.972). 그런데 biofilm의 깊이 방향으로 1 µm 해상도로 보면, 내강(lumen) 쪽이 높고 안쪽으로 갈수록 낮은 방사형 구배가 뚜렷하다. 즉 벌의 장은 길이로는 균질하지만 두께로는 층화되어 있다. 지금까지의 어떤 방법으로도 볼 수 없던 구조다.
종 특이적 대사의 직접 관찰(Fig 4). Gilliamella를 함께 넣으면 그림이 갈린다. 아라비노스 대사 유전자를 가진 G. apicola ESL309와 공동정착하면 센서가 꺼진다(먹어치워서). 그 유전자가 없는 G. apis ESL169와 함께면 센서가 켜진다(남아서). 교과서적으로 예측되던 종간 대사 분업이 살아있는 장 안에서 형광으로 증명된 것이다.
화분(pollen)을 먹이면 더 극적이다. 화분 유래 아라비노스가 biofilm 안에서 얼룩덜룩한(patchy) 미세 니치를 만든다. 저자들의 해석: 화분 알갱이가 biofilm에 박혀 국소 영양소 방출점으로 작동하고, 그 주변에 마이크로미터 단위의 당 오아시스가 생긴다는 것.
저자들이 스스로 밝힌 한계
정직한 논문이다. (1) 센서 기능은 7일 창 안에서만 검증했고 장기 유전적 안정성은 직접 평가하지 않았다. 14일차엔 부하가 감소한다. (2) 항생제 없는 조건에서 플라스미드가 부분 소실된다(pAC51b 유지율 34–42%). 다만 기능성 세포 수(평균 4.3×10⁷ CFU/ml)는 충분히 남는다. (3) S. alvi에는 믿을 만한 중립적 염색체 통합 부위(landing pad)가 적다. (4) 화분 조건에서는 Gilliamella 종 차이가 구분되지 않는다 — 화분의 아라비노스 총량이 워낙 높아 국소 고갈이 신호를 못 바꾸기 때문이다.
이 논문은 같은 그룹의 2024년 PLOS Biology 논문(IPTG 센서, e3002523)의 확장판이다. 2024년이 “비침습 분변 샘플링으로 장 환경을 읽는다”였다면, 2026년은 “염색체에 심어 공간 해상도로 읽는다”다.
3. 첫 번째 계보: 꿀벌 공생세균 조작 프로그램
이 로잔 그룹의 작업이 가능했던 것은 텍사스에서 먼저 깔아둔 길 때문이다.
BTK 툴킷 (2018)
Leonard SP 외, ACS Synthetic Biology 7(5):1279–1290. Nancy Moran과 Jeffrey Barrick 그룹(UT Austin). RSF1010 광숙주 복제기점 기반으로, Golden Gate 조립이 가능한 모듈형 플라스미드 세트를 만들었다. Yeast Toolkit의 8-part 스킴과 호환된다. S. alvi, Gilliamella apicola, Bartonella apis, Serratia에서 형광단백질을 발현시켰고, B. apis에서 CRISPRi 억제를, Cas9로 S. alvi 접착 유전자 knockout을 시연했다.
이 논문의 의미는 “벌 장세균이 조작 가능한 chassis가 되었다”는 선언이다.
분수령: dsRNA로 숙주 면역을 켜다 (2020)
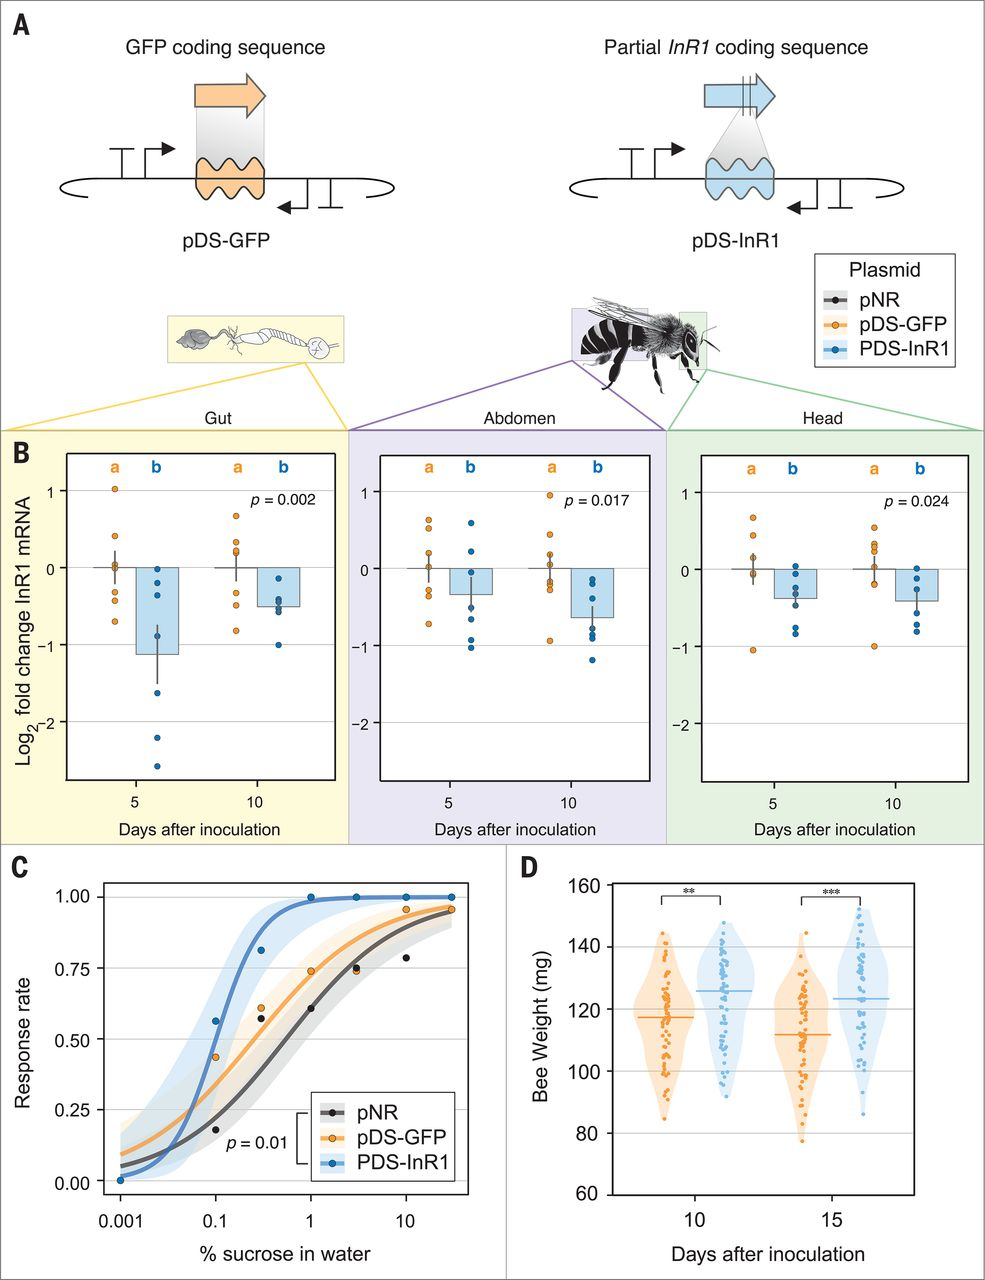
Leonard SP 외, “Engineered symbionts activate honey bee immunity and limit pathogens,” Science 367(6477):573–576.
핵심 아이디어는 단순하다. S. alvi 플라스미드에 서로 마주보는(inverted) 두 개의 프로모터를 넣으면 이중가닥 RNA가 계속 만들어진다. 이 dsRNA가 벌의 RNAi 기구를 상시 가동시킨다. 세균이 정착해 있는 한 계속.
결과:
- 정착·지속: 500 CFU 접종으로도 정착하고, 5일 후 5.0×10⁷ CFU까지 증식. dsRNA 발현과 기능이 최소 15일 유지.
- 개념 증명: 인슐린 수용체 InR1을 표적하자 여러 조직에서 여러 날에 걸쳐 발현이 억제됐고, 저농도 sucrose 감수성 증가와 체중 증가가 따라왔다. 대조적으로 dsRNA를 뇌에 직접 주입하면 억제는 하루도 못 간다. 지속성이 이 플랫폼의 핵심 자산이다.
- 변형날개바이러스(DWV): pDS-DWV2 정착 벌은 바이러스 주입 후 생존이 유의하게 개선됐다(Wald test, p<0.001, 총 980마리, 세 군집 출처).
- 바로아 응애: 응애의 필수 유전자 14개 서열을 연결한 pDS-VAR 정착 벌을 빨아먹은 응애가 더 빨리 죽었다.
여기서 인용 위생에 대해 한마디 해두고 싶다. 이 논문을 소개하는 한국어·영어 기사 대부분이 “DWV 생존율 36.5% 상승”, “응애 사망률 70% 증가”라는 수치를 쓴다. 그런데 논문 본문에는 그 백분율이 없다. 본문은 생존곡선과 통계량으로 보고하고, 36.5%와 70%는 UT Austin 보도자료의 요약 수치다. 인용할 때는 출처를 구분해야 한다. 이건 사소한 문제가 아니다. 보도자료 수치가 2차·3차 인용을 거치며 “논문이 보고한 값”으로 굳어지는 것은 우리 분야의 만성질환이다.
회의론: Nazzi의 논평 (2020)
Francesco Nazzi가 Frontiers in Ecology and Evolution 8:538520에 단독 저자 논평을 실었다. 제목 그대로 “Commentary: Engineered symbionts activate honey bee immunity and limit pathogens”. 그는 “이런 기술 주도적 접근에 잠재적 함정이 보인다”고 직설적으로 쓴다.
핵심 지적 두 가지. 첫째, 이 방법은 성충에 붙어 있는 phoretic 단계 응애에만 작용한다. 그런데 응애의 번식은 봉방 안 preimaginal 단계에서 일어난다. 번식 단계를 못 건드리면 개체군 억제 효과는 제한적이다. 둘째, 응애가 적응할 것이다. 표적 유전자 서열의 변이든 행동 변화든.
이 논평은 이 분야를 공부할 때 반드시 함께 읽어야 한다. Science 논문 하나로 문제가 풀렸다고 느끼는 순간, 우리는 실험실 생존곡선과 봉군 수준 현실 사이의 간극을 잊는다.
그 이후
- FUGUES (Leonard et al., Nature Protocols 2022): 공생세균 매개 RNAi를 벌 기능유전체학 도구로 표준화. 진사회성 곤충에서 정통 정방향 유전학이 거의 불가능하다는 한계를 우회하는 방법론. 초파리 연구자로서 이 대목이 가장 부럽고도 안쓰럽다. 우리는 GAL4/UAS로 하는 일을, 그들은 세균을 먹여서 한다.
- SnODIFY (bioRxiv 2023.09.19.558440): 전기천공 + 상동재조합 한 단계로 S. alvi knockout/knock-in. 7개 단일유전자 결손주 확보. 접합 기반 Cas9의 복잡성과 off-target을 피한다. 2026년 센서 논문의 염색체 통합 파이프라인이 여기서 나왔다.
- Nosema 제어 (PNAS 2023;120, doi:10.1073/pnas.2220922120): Vairimorpha (Nosema) ceranae의 필수 유전자 SSP, PTP1을 표적하는 dsRNA를 S. alvi가 발현. 감염 억제와 생존 개선.
- 이중 표적 (PubMed 41538018): Varroa와 Nosema를 동시에 표적. 동시 감염 시 생존 45.6% 개선. 더 흥미로운 건 사회적 전파 정량화다 — 합사만으로 조작 균주가 어린 벌의 52%, 늙은 벌의 16%에 전파됐다. 진사회성이 곧 전달 시스템이라는 뜻이고, 동시에 봉쇄가 어렵다는 뜻이기도 하다.
그리고 행동·인지
벌 장내세균이 행동을 바꾼다는 증거는 이미 상당하다. Zheng 등(2017, PNAS)은 미생물총이 sucrose 감수성과 인슐린 신호에 영향을 준다고 보고했다. Cabirol 등은 5속 정의공동체(Gilliamella, Snodgrassella, Bombilactobacillus Firm-4, Lactobacillus Firm-5, Bifidobacterium)가 PER 조건화로 측정한 후각 학습과 단기기억을 향상시킨다고 보고했고, 특히 Gilliamella나 Snodgrassella를 빼면 단기기억이 손상됐다. Snodgrassella 결손 시에는 알라닌, anthranilic acid, tyramine, 5-hydroxylysine 같은 대사물이 변했다. Zhang·Mu 등(2022)은 Lactobacillus Firm-5의 tryptophan 대사가 장→혈림프→뇌 경로로 학습·기억을 조절한다고 제안했다. 최근 Nature Communications 논문은 도파민 경로를 통한 회피학습 조절까지 보고했다.
여기서 조작 도구와 행동 표현형이 만난다. 지금까지는 “이 세균을 빼면 기억이 나빠진다” 수준이었지만, SnODIFY와 센서 기술이 있으면 “이 세균의 이 유전자를 끄면, 이 대사물이 장의 이 위치에서 사라지고, 그래서 기억이 나빠진다”까지 갈 수 있다. 그게 다음 10년의 그림일 것이다.
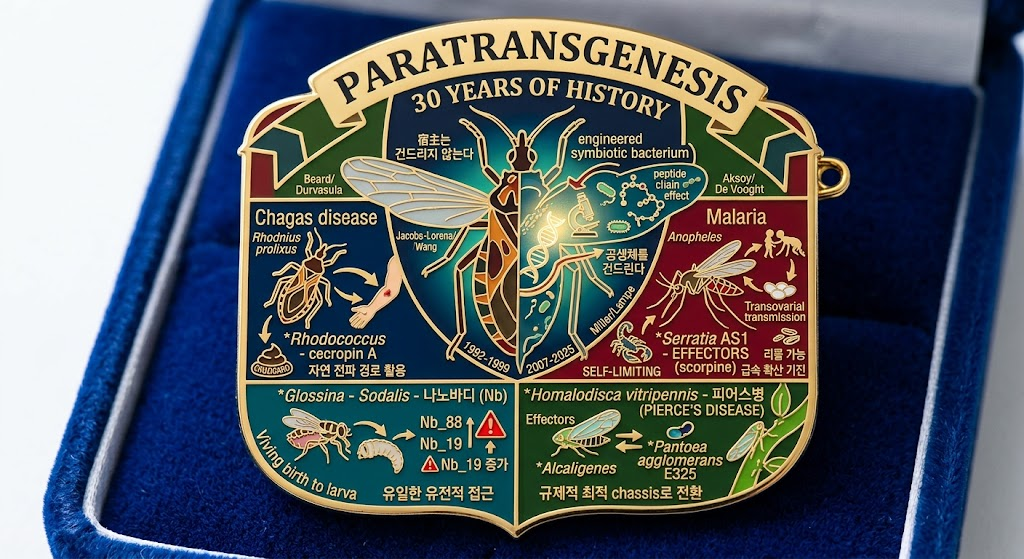
4. 두 번째 계보: paratransgenesis의 30년
꿀벌 이야기는 사실 훨씬 오래된 전통의 최신 분기다.
샤가스병과 빈대 (1992–1999)
Paratransgenesis라는 용어와 개념은 Beard, Durvasula, Richards 그룹의 샤가스병 연구에서 확립됐다. 매개충 Rhodnius prolixus(흡혈노린재)는 방선균 Rhodococcus rhodnii를 장에 품고 산다. 이 세균 없이는 빈대가 제대로 자라지 못한다.
1992년 Beard 등이 이 세균을 shuttle plasmid로 형질전환했다(Am J Trop Med Hyg 46:195). 1997년 Durvasula 등이 여기에 항균펩티드 cecropin A를 발현시켜 장 내 Trypanosoma cruzi를 제거하거나 100배 감소시켰다(PNAS 94:3274).
1999년에는 전달 문제를 건드린다. 빈대 약충은 성충의 분변을 먹어 공생세균을 획득한다. 그래서 인공 분변 펠릿 CRUZIGARD를 만들어 조작 세균을 야생 개체군에 퍼뜨리는 시뮬레이션을 했다(Med Vet Entomol 13:115). 이 연구에서 rDB3라는 항체 단편을 발현시켰는데, 곤충 안에서 기능성 포유류 항체 단편을 발현시킨 최초 사례로 기록된다.
개념의 핵심이 여기 다 들어 있다: 숙주는 건드리지 않는다. 공생체를 건드린다. 그리고 숙주의 자연적 전파 경로를 전달 시스템으로 빌린다.
말라리아 모기 (2007–2025)
- Pantoea agglomerans (Wang et al., PNAS 2012, doi:10.1073/pnas.1204158109). Jacobs-Lorena 그룹. 대장균 HlyA 분비계를 이용해 항말라리아 effector(scorpine, (EPIP)₄, anti-Pbs21 scFv, SM1)를 분비시켰다. P. falciparum·P. berghei 발달을 최대 98% 억제, 유병률 최대 84% 감소. 다만 개체군을 퍼져나가게 하는 기전은 없었다.
- Serratia AS1 (Wang et al., Science 2017;357:1399). 이게 판을 바꿨다. Anopheles 난소에서 분리한 AS1은 중장·난소·수컷 부속샘에 안정적으로 정착하고, 교미와 경란(transovarial) 전파로 개체군을 빠르게 퍼진다. 5% 접종이 다음 세대 100%가 된다. 항말라리아 effector 분비 시 P. falciparum을 억제하면서 모기 적합도에는 거의 영향이 없다. 이후 “self-limiting paratransgenesis” 연구(PLOS NTD 2020)는 플라스미드 소실과 극히 낮은 HGT 빈도를 근거로 “리콜 가능성”을 제시했다 — 규제 친화적 설계의 모범 사례다.
- Asaia (Favia 그룹). Anopheles stephensi의 우점 초산균으로, 수직·수평·성적 전파를 모두 한다. scorpine-alkaline phosphatase 등을 분비하도록 조작(PLOS ONE 2015), semi-field 대형 케이지 파일럿까지 갔다(Parasites & Vectors 2016). 다만 야외 채집 A. gambiae/coluzzii에서는 Asaia와 P. falciparum 발달 간 상관이 없다는 보고도 있다. 종·환경 의존성이 크다.
대조군으로 Wolbachia(World Mosquito Program의 wMel/wAlbB)를 언급해둘 필요가 있다. 이건 엄밀히는 paratransgenesis가 아니다. 유전자 조작이 아니라 transinfection — 이미 존재하는 세균을 새 숙주에 옮겨 심는 것이다. 그래서 규제 장벽이 훨씬 낮았고, 그 덕에 실제 야외 배포까지 간 거의 유일한 사례가 됐다. 이 대비는 시사하는 바가 크다.
체체파리와 Sodalis
체체파리(Glossina)는 태생(viviparous)이다. 알을 낳지 않고 애벌레를 낳는다. 그래서 생식선 형질전환이 원천적으로 불가능하다. paratransgenesis가 유일한 유전적 접근이 되는 셈이다.
Aksoy 그룹과 De Vooght·Van Den Abbeele 그룹이 이차 공생체 Sodalis glossinidius를 anti-trypanosome 전달체로 개발했다. 기능성 나노바디(Nb) 발현·분비를 시연했고(Microbial Cell Factories 2012;11:23, 2014;13:156), Nb_88은 중장 감염을 유의하게 억제했다. 그런데 흥미롭게도 Nb_19는 정반대로 정착을 증가시켰다. 항체 단편이 기생충에 붙는 방식에 따라 결과가 뒤집힐 수 있다는 경고다.
그리고 농업
유리날개매미충(Homalodisca vitripennis)이 옮기는 Xylella fastidiosa(피어스병)를 막기 위해, Miller·Lampe 그룹이 전장 공생체 Alcaligenes xylosoxidans를 anti-Xylella scFv 발현체로 조작했다. dsRed 태깅으로 이 세균이 병원체와 같은 cibarium 니치에 최대 5주간 머무는 것도 보였다.
그런데 이 세균이 사람에게 병원성이 있다는 우려가 제기되면서, EPA 승인을 받은 포도 내생균 Pantoea agglomerans E325로 갈아탔고, 모의 포장 조건에서 전달을 증명했다(BMC Biotechnology 2015).
이 전환은 그 자체로 교훈이다. 최적의 생물학적 chassis가 최적의 규제적 chassis는 아니다.
5. 세 번째 축: 초파리, 혹은 기전의 해상도
여기서 내 본업 쪽으로 넘어온다. 벌 연구가 “무엇이 가능한가”를 보여준다면, 초파리 연구는 “어떻게 그런 일이 일어나는가”를 분자 수준까지 못박는다. 두 시스템은 경쟁 관계가 아니라 상보 관계다.
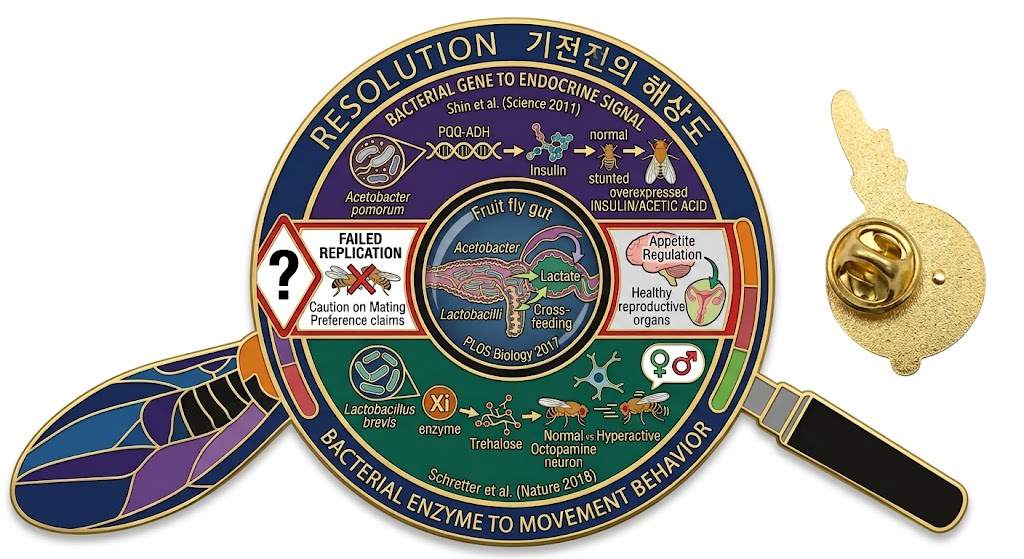
세균 유전자 하나가 숙주 내분비를 바꾼다
Shin SC, Kim S-H, You H, … Lee W-J, “Drosophila microbiome modulates host developmental and metabolic homeostasis via insulin signaling,” Science 2011;334:670.
Acetobacter pomorum의 PQQ 의존 알코올탈수소효소(PQQ-ADH) 활성이 숙주 인슐린/IGF 신호를 조절한다. PQQ-ADH 변이균만 정착시킨 초파리는 발달속도, 체구, 대사, 장줄기세포 활성이 모두 망가진다. 그리고 DILP를 과발현시키거나 acetic acid를 먹이면 회복된다.
이 논문의 구조가 중요하다. 세균의 특정 유전자 → 특정 대사산물 → 숙주의 특정 신호경로 → 표현형. 네 칸이 모두 채워져 있다. 벌 연구는 아직 이 완결성에 도달한 사례가 드물다.
Storelli 등(Cell Metab 2011;14:403)의 Lactobacillus plantarum–TOR 연구도 같은 계열이다. 다만 이 논문을 인용할 때 주의할 점이 있다. 후대의 요약들이 “L. plantarum이 분지쇄아미노산(BCAA)을 통해 성장을 촉진한다”고 쓰는 경우가 많은데, 원 논문에 BCAA 직접 증거는 없다. 이 점은 Science Signaling 2012에서 비판받았다. 인용 사슬이 원문보다 강한 주장을 만들어내는 또 하나의 사례다.
세균 효소 하나가 보행을 바꾼다
Schretter CE, … Mazmanian SK, “A gut microbial factor modulates locomotor behaviour in Drosophila,” Nature 2018;563:402.
무균 초파리는 과활동성(hyperactive)이 된다. 이 그룹은 Lactobacillus brevis의 xylose isomerase(Xi) 단독으로 정상화할 수 있음을 보였다. Xi가 trehalose 등 당 수준을 조절하고, 이것이 octopamine 뉴런 활성을 통해 보행을 제어한다.
그리고 이 효과는 암컷에서만 나타난다. 성적 이형성이다. 미생물총–뇌 축을 다룰 때 성별을 뭉개면 안 된다는 경고이기도 하다.
내가 이 논문을 좋아하는 이유는, “장내세균이 행동을 바꾼다”는 모호한 문장을 “이 세균의 이 효소가 이 당을 통해 이 신경전달물질 시스템을 통해 이 행동을 바꾼다”로 번역해냈기 때문이다.
세균이 식욕과 생식을 바꾼다
Leitão-Gonçalves R, … Ribeiro C, PLOS Biology 2017;15:e2000862. 필수아미노산이 결핍되면 초파리는 효모(단백질) 식욕이 폭발한다. 그런데 Acetobacter pomorum과 Lactobacilli가 함께 있으면 이 식욕이 억제되고 생식이 회복된다.
가장 놀라운 부분: 숙주의 아미노산 역가는 변하지 않는다. 즉 세균이 영양을 공급해서가 아니라, 어떤 신호를 통해 숙주의 욕구 자체를 재설정한다는 뜻이다. 후속 연구(Nature Communications 2020)는 Acetobacter의 lactate가 필요충분하며 교차섭식이 관여함을 보였다.
그리고 재현되지 않은 것
여기서 반드시 짚어야 할 사례가 있다.
Sharon G 등, “Commensal bacteria play a role in mating preference of Drosophila melanogaster,” PNAS 2010;107:20051. 전분 배지와 당밀 배지에서 키운 초파리가 같은 배지 출신끼리 짝짓기를 선호하며, 이것이 Lactobacillus plantarum에 의해 매개된다는 보고. hologenome 이론의 대표 증거로 널리 인용됐다.
그런데: 2013년에 통계 정정(Correction)이 나왔다(다항분포 모델 부적합). 그리고 Leftwich PT, Clarke NVE, Hutchings MI, Chapman T, “Gut microbiomes and reproductive isolation in Drosophila,” PNAS 2017;114:12767에서 잘 통제된 재현 실험을 했고, 생식 격리는 없었다. Rosenberg 측은 methylparaben 농도 차이를 반박 논거로 제시했고 PNAS 지면에서 공방이 오갔다.
현재 상태를 정직하게 요약하면: 핵심 주장은 재현되지 않았다. 이 사례는 미생물총 연구, 특히 hologenome 담론이 얼마나 쉽게 과장으로 흐를 수 있는지를 보여주는 교육적 표본이다. 벌 장내세균과 학습·기억에 관한 최근 논문들을 읽을 때도 이 경계심을 유지할 필요가 있다.
6. 종합: 무엇이 풀렸고 무엇이 안 풀렸나
왜 벌 장이 유난히 좋은 무대인가
핵심 phylotype 8–10개가 전체의 95–99%. 숙주 특이적. 수직·사회적으로 전파됨. 배양 가능. gnotobiotic 재구성 가능. S. alvi는 keystone 종이면서 장벽에 밀착 정착한다. 합성생물학 chassis로서 이만한 조건을 갖춘 자연 시스템은 드물다.
전달 경로의 장단점
조작 공생체는 지속적이고, 스스로 증식하고, 저렴하다. 대신 토착 균주와의 정착 경쟁, 유전적 불안정성, 봉쇄 부담이 따른다. 직접 dsRNA 급이는 단순하지만 비싸고 환경에서 빨리 분해되어 반복 투여가 필요하다. 숙주 형질전환은 정밀하지만 진사회성 벌이나 태생 체체파리에서는 사실상 불가능하다. Gene drive는 확산력이 압도적이지만 되돌리기 어렵고 규제·생태 위험이 크다.
이 표를 놓고 보면 왜 공생체 조작이 중간 지대의 매력적인 타협점인지가 분명해진다. 그리고 왜 그 중간 지대가 가장 논쟁적인지도.
생물안전과 규제
GM 미생물의 환경 방출은 EPA/USDA/EFSA 규제 대상이다. 핵심 우려는 수평 유전자 전달(HGT)과 환경 잔류다.
대응 기술로는 합성 auxotrophy, kill switch(Deadman/Passcode 회로), Xeno-DNA 봉쇄, DNA 워터마크가 개발되어 있다. NIH의 재조합 DNA 지침은 escape frequency 목표를 10⁻⁸ — 세포 1억 개당 1개 — 로 제시한다.
그런데 앞서 본 “합사만으로 어린 벌 52%에 전파”라는 데이터를 이 기준과 나란히 놓아보면 긴장이 보인다. 진사회성이 전달 효율을 높이는 바로 그 성질이, 봉쇄를 어렵게 만드는 성질이다. 봉군은 닫힌 상자가 아니다. 드리프팅, 약탈, 공유 화분원을 통해 다른 봉군과, 그리고 야생 벌과 이어져 있다.
회의적 시각의 목록
(1) 실험실 생존 개선이 봉군 수준·야외 조건으로 이어질지 불확실하다. (2) 토착주와의 정착 경쟁에서 조작주가 밀릴 수 있다. (3) off-target RNAi — 차세대 dsRNA 살응애제의 in silico 분석에서는 벌 관련 절지동물에 영향이 없다고 보고됐지만, 사례별 평가가 필요하다. (4) 저항성 진화 — Nazzi의 지적. (5) 비표적 화분매개자에 대한 생태 위험.
최근의 종합 리뷰들도 결론은 비슷하다. 야외 즉시 대체재가 아니라, 기전 검증·생태 봉쇄·사례별 규제가 선행되어야 할 유망 플랫폼이라는 것.
7. 다시 처음으로: 왜 센서가 중요한가
이 긴 계보를 훑고 나서 2026년 논문으로 돌아오면, 이 연구의 위치가 달라 보인다.
지난 30년의 paratransgenesis는 대체로 출력에 집중했다. 무엇을 발현시킬 것인가. cecropin인가 scorpine인가 나노바디인가 dsRNA인가. 효과가 있었는가 없었는가.
그런데 그 모든 실험은 입력을 모른 채 진행됐다. 조작된 세균이 실제로 장의 어느 위치에서, 어떤 화학적 환경에서, 어떤 이웃과 어떤 자원을 놓고 경쟁하며 살고 있는지를 아무도 마이크로미터 해상도로 본 적이 없다. 정착 실패나 발현 불안정이 일어나도 왜 그런지 알 수 없었다.
Chhun 등의 센서는 그 블랙박스를 연다. 회장이 길이로는 균질하고 두께로는 층화되어 있다는 발견, 화분이 biofilm 안에 미세 오아시스를 만든다는 발견 — 이런 것들은 “어디에 무엇을 심어야 하는가”라는 공학적 질문에 직접 답한다.
나는 이것이 합성생물학이 성숙하는 방식이라고 생각한다. 처음에는 넣고 본다. 그다음에는 왜 되는지 묻는다. 그리고 결국에는 읽는 도구를 만든다. 전기생리학이 뉴런에 전극을 꽂는 것에서 시작해 칼슘 이미징과 유전자 encoded 센서로 간 궤적과 닮았다. GCaMP가 신경과학을 바꾼 방식으로, 이런 세균 센서가 미생물 생태학을 바꿀 수도 있다.
8. 남은 질문들
공부 노트를 닫으며, 내가 흥미롭다고 느낀 열린 질문들:
첫째, 다중 센서. 아라비노스 하나가 아니라 여러 대사물을 서로 다른 색으로 동시에 읽으면 어떨까. 장 내부의 대사 지형도를 컬러로 그릴 수 있다.
둘째, 센서와 이펙터의 결합. 조건부 발현 회로를 붙이면 “특정 화학적 조건에서만 dsRNA를 만드는” 세균이 가능하다. 예를 들어 병원체 감염 신호가 있을 때만 켜지는 방어 회로. 이건 봉쇄 관점에서도 이점이 있다.
셋째, 신경 축. 벌에서 Snodgrassella 결손이 tyramine을 바꾸고, 초파리에서 L. brevis가 octopamine 경로를 통해 보행을 바꾼다. 내 관심사인 신경펩티드 회로 — sNPF는 인슐린 신호와 얽혀 있고, SIFamide는 내장-뇌 축의 후보다 — 와 장내세균의 접점은 아직 거의 비어 있다. 벌 쪽 도구를 초파리 쪽 회로 해상도와 결합하면 볼 것이 많을 것 같다. (덧붙이자면 이건 아직 문헌으로 뒷받침되는 연결이 아니라 내 쪽의 추측이다.)
넷째, 그리고 가장 어려운 것. 이 기술이 실제로 봉군을 구할 것인가. 미국 관리 봉군은 2024년 4월부터 2025년 4월 사이 55.6%가 폐사했다. 연례 조사가 시작된 2010년 이래 최고치다. 이 숫자 앞에서 실험실 생존곡선은 초라하다. 그러나 동시에, 이 숫자가 왜 이 연구들이 계속되어야 하는지의 이유이기도 하다.
부기: 인용에 관하여
이 글을 쓰면서 확인한 것 중 독자와 공유할 만한 것:
- 2026 PLOS Biology 논문은 bioRxiv 프리프린트(2025.11.28.691108)로도 공개되어 있다. 담당 편집자는 Baojun Wang(절강대), 이해상충 없음.
- Leonard 2020의 36.5%·70%는 보도자료 수치이고 논문 본문 값이 아니다.
- Sharon 2010은 재현되지 않았다.
- Storelli 2011의 BCAA 해석은 원문보다 강한 2차 요약이다.
- 본문 중 Metarhizium(St. Leger), Wolbachia WMP 현장 데이터, D. suzukii 공생체 조작, 신경펩티드 접점 부분은 원문 직접 확인 없이 2차 문헌과 기존 지식에 기댄 서술이다. 정식 인용 전 확인이 필요하다.
주요 참고문헌
Chhun A, et al. PLOS Biology 2026;24(9):e3003997. doi:10.1371/journal.pbio.3003997
Chhun A, et al. PLOS Biology 2024;22(3):e3002523. doi:10.1371/journal.pbio.3002523
Martinson VG, et al. PNAS 2012. doi:10.1073/pnas.1202970109
Leonard SP, et al. ACS Synth Biol 2018;7(5):1279–1290. doi:10.1021/acssynbio.7b00399
Leonard SP, et al. Science 2020;367(6477):573–576. doi:10.1126/science.aax9039
Nazzi F. Front Ecol Evol 2020;8:538520. doi:10.3389/fevo.2020.538520
Leonard SP, et al. Nature Protocols 2022. (FUGUES)
Huang Q, et al. PNAS 2023;120. doi:10.1073/pnas.2220922120
Durvasula RV, et al. PNAS 1997;94:3274
Wang S, et al. PNAS 2012;109. doi:10.1073/pnas.1204158109
Wang S, et al. Science 2017;357:1399. doi:10.1126/science.aan5478
De Vooght L, et al. Microb Cell Fact 2012;11:23; 2014;13:156
Shin SC, et al. Science 2011;334:670. doi:10.1126/science.1212782
Storelli G, et al. Cell Metab 2011;14:403
Schretter CE, et al. Nature 2018;563:402. doi:10.1038/s41586-018-0634-9
Leitão-Gonçalves R, et al. PLOS Biology 2017;15:e2000862
Sharon G, et al. PNAS 2010;107:20051 (Correction 2013)
Leftwich PT, et al. PNAS 2017;114:12767. doi:10.1073/pnas.1708345114
벌의 장, 합성생물학, 그리고 곤충 공생세균 조작의 계보 — PLOS Biology 2026 논문에서 출발하는 장문 에세이
(보통 과학자의 공부용 노트)
TL;DR
- 사용자가 지정한 PLOS Biology 논문(Chhun et al., 2026, e3003997)은 “치료용·방제용 조작”이 아니라 꿀벌 장 공생세균 Snodgrassella alvi를 아라비노스(arabinose) 생체 바이오센서로 개조해, 살아있는 벌 장 안에서 당(sugar) 농도의 미크론 스케일 공간 구배를 형광으로 시각화한 도구 논문이다.
- 이 연구는 Moran/Barrick 계열의 꿀벌 공생세균 조작(2018 BTK 툴킷, 2020 Science의 dsRNA/RNAi 논문)과, 더 거슬러 올라가 1990년대 Rhodnius–Rhodococcus paratransgenesis에서 시작된 곤충 공생세균 조작 계보의 최신 분기점이다.
- 초파리 gnotobiotic 연구(Shin/Lee 2011, Storelli/Leulier 2011, Schretter/Mazmanian 2018, Ribeiro 2017)는 “세균 대사산물→숙주 신경·생리” 기전을 분자 수준까지 규명하는 상보적 모델이며, 벌 시스템의 기전적 해석 틀을 제공한다.
Key Findings
1. 지정 논문의 정체 확인. URL의 논문은 Audam Chhun, Andrew Quinn, Alicia I. Pérez-Lorente, Théodora Steiner, Florian Zoppi, Thi Huong Giang Nguyen, Philipp Engel, Yolanda Schaerli 저, “An engineered bacterial symbiont maps micron-scale sugar gradients in the honeybee gut,” PLOS Biology 24(9):e3003997, 2026년 9월 16일 게재. 소속은 전원 스위스 로잔대학교(University of Lausanne) 기초미생물학과. DOI 10.1371/journal.pbio.3003997. 이 논문은 PLOS Biology의 “Update Article”로, 같은 그룹의 2024년 논문(Chhun et al., PLOS Biology 22(3):e3002523, IPTG 바이오센서)을 확장한 것이다. 즉 이 논문은 병해충 방제용 조작이 아니라 “벌 장 내부 화학 환경을 읽는 살아있는 센서” 논문이라는 점을 명확히 해 둔다.
2. 계보의 두 축. (a) 꿀벌 공생세균 조작 프로그램: Moran·Barrick(UT Austin)의 BTK 툴킷(2018)→dsRNA/RNAi Science 논문(2020)→FUGUES 프로토콜(2022)→SnODIFY 유전체 편집(2023), 그리고 로잔의 Engel·Schaerli 바이오센서 계열(2024, 2026). (b) 더 넓은 paratransgenesis 계보: Rhodnius(1997)→Anopheles(Pantoea 2012, Serratia AS1 2017, Asaia)→tsetse(Sodalis)→sharpshooter(Alcaligenes/Pantoea)로 이어지는 30년 지적 전통.
3. 초파리는 기전 해상도의 표준. 벌 시스템이 “무엇을 할 수 있는가”를 보여준다면, 초파리 gnotobiotic 연구는 “어떤 세균 분자가 어떤 숙주 경로를 통해 어떤 표현형을 만드는가”를 유전자·대사산물 수준에서 못박는다.
Details
I. 지정 논문 정독: S. alvi를 아라비노스 바이오센서로
중심 질문. 꿀벌 장 미생물총은 숙주 영양·면역·병원체 저항성에 큰 영향을 미치지만, 정작 그 세균들이 장 안에서 경험하는 영양소의 공간 분포는 거의 알려지지 않았다. 특히 미크론 스케일의 대사물 구배는 니치 점유·교차섭식(cross-feeding)·숙주 표현형을 좌우하는데, 기존 방법(벌크 크로마토그래피/질량분석, 마이크로센서)은 밀리미터 해상도이거나 공간 정보를 잃는다. 저자들은 “살아있는 세포 바이오센서”로 이 문제를 우회한다.
실험 시스템과 유전 도구. 대상 세균은 꿀벌 장 이레움(ileum) 벽에 biofilm을 형성하는 핵심 공생균 Snodgrassella alvi wkB2T. 숙주는 Apis mellifera carnica. S. alvi는 원래 탄수화물을 탄소원으로 수입·이용하는 유전자가 없다는 점을 역이용했다. 저자들은:
- 대장균 유래 AraE(아라비노스 수송체)를 tetC 위치에 염색체 통합해 아라비노스 수입 능력 부여.
- AraC–pBAD 조절계를 S. alvi에서 작동하도록 새 합성 프로모터 pBAD25(대장균 pBAD의 AraC 결합부위 O1L·O1R·I1·I2 + CP25 코어 프로모터의 하이브리드)를 설계.
- 저강도 합성 프로모터 세트를 도입(핵심적으로 CP6은 기존 CP25보다 70%, PA3보다 50% 낮은 활성)해 막단백질 AraE를 낮게, 안정적으로 발현.
- 고부담 유전자의 염색체 통합을 위해 R6K 조건부 복제기점(pir+ 균주에서만 복제) 기반 suicide plasmid 세트를 표준화(대장균 내 복제 회피로 araE 독성·돌연변이 위험 최소화).
- araC와 gfp를 별도 플라스미드에 실은 dual-plasmid 설계(다유전자 구조물의 유전적 불안정성 회피). 최종 균주는 S. alvi ac02(CP6-구동 염색체 araE + CP25-구동 araC[pTF-FC2 계열] + pBAD25-구동 gfp[RSF1010 계열]).
주요 결과(그림별).
- Fig 1: ac02는 시험관 내에서 아라비노스에 용량 의존적으로 반응. 6,661 µM에서 최대 10.4배 형광 증가, 검출한계 6.7 µM(1.7배 신호, Welch t-test t(4.6)=14.8, p<0.0001).
- Fig 2: 반응 특이성 — 리보스·자일로스에는 무반응, 아라비노스에만 4.5배 반응(구조 이성질체 구별, AraC-pBAD의 L-arabinose 특이성과 일치). GC-MS로 측정한 장 내 아라비노스 농도는 무균(MD) 벌에서 2,204.4 ± 1,071.1 µM, 정상 세균총(CL) 벌에서 72.2 ± 16.4 µM(n=8) — 즉 미생물총이 아라비노스를 대량 소비함을 시사(gut volume 19.1 ± 4.7 µl로 정규화). 항생제 없는 조건에서 플라스미드는 부분 소실되나(pAC51b가 취약, 유지율 -ab 41.7%·-ab+ara 34.4%) 기능성 세포 수(평균 4.3×10⁷ CFU/ml)는 충분히 유지.
- Fig 3: 생체 내 정착·기능. 단일 정착 벌의 100%(25/25), 공동정착 벌의 95.6%(22/23)가 7일차에 센서 보유(평균 부하 각각 4.3×10⁵·6.0×10³ CFU/µl). 14일차엔 감소. 형광은 아라비노스 농도(0/10/100/1,000 µM)에 용량 의존. 핵심 발견: 이레움 길이 방향(longitudinal, anterior/mid/posterior)으로는 균일(two-way ANOVA F(2,95)=0.03, p=0.972)하나, biofilm 깊이 방향(transversal)으로는 1 µm 해상도에서 lumen 쪽이 높은 방사형 당 구배가 존재(10·100 µM 조건).
- Fig 4: Gilliamella 공동정착. 아라비노스 대사 유전자가 있는 G. apicola ESL309는 아라비노스를 고갈(센서 무반응), 없는 G. apis ESL169는 축적(센서 반응) — 종 특이적 대사 특화를 생체 내에서 직접 검증(Gilliamella는 E2-crimson으로 태깅). 화분(pollen) 급이 시에는 화분 유래 아라비노스가 biofilm 안에서 강한 방사형 이질성(patchy micro-niche)을 보이며 개체 간 편차도 큼(Gilliamella 종에 무관, three-way ANOVA 종 효과 F(1,90)=0.07, p=0.796).
제안 기전. 화분 알갱이가 biofilm 안에 박혀 국소 영양소 방출점(nutrient-release site)으로 작용하고, 숙주 효소와 세균 대사가 이를 분해하면서 미크론 스케일의 당 micro-niche를 만든다. 이 구배가 미생물 공동체의 공간 구조를 형성한다는 가설.
저자들이 밝힌 함의와 한계. 함의: 조작된 공생균은 자연 니치를 보존한 채 대사물을 1 µm 해상도로 읽는 도구가 될 수 있고, 이는 상용 질량분석영상(MALDI-MSI)의 통상 해상도(5–20 µm, 조직 루틴에서는 50–200 µm; Ten-Fold Expansion MALDI-MSI, bioRxiv 2024.10.20.619316 및 PMC3630667)보다 미세하다. 한계(저자 명시): (1) 센서 기능은 7일 창(window) 내에서만 검증, 장기 유전적 안정성은 직접 평가 안 함; (2) S. alvi의 신뢰할 만한 중립적 landing pad(염색체 통합 부위)가 적음; (3) araC 플라스미드가 비선택 조건에서 소실; (4) 화분 조건에서는 Gilliamella 종 차이가 센서로 구분되지 않음(화분 아라비노스 총량이 높아 국소 고갈이 신호를 못 바꿈). 담당 편집자는 Baojun Wang(Zhejiang University). 이해상충 없음. 경쟁적 상업 응용이 아니라 기초 도구 논문이므로 별도 Primer는 확인되지 않았다.
II. 꿀벌 공생세균 조작 프로그램 (Moran·Barrick 계열 + 로잔 계열)
출발점 — BTK 툴킷(2018). Leonard SP, Perutka J, Powell JE, Geng P, Richhart DD, Byrom M, Kar S, Davies BW, Ellington AD, Moran NA, Barrick JE. “Genetic Engineering of Bee Gut Microbiome Bacteria with a Toolkit for Modular Assembly of Broad-Host-Range Plasmids.” ACS Synthetic Biology 2018;7(5):1279–1290. RSF1010 복제기점 기반, Golden Gate로 조립하는 모듈형 광숙주 플라스미드(Yeast Toolkit 8-part 스킴 호환). S. alvi, Gilliamella apicola, Bartonella apis, Serratia에서 형광단백질 발현, B. apis에서 CRISPRi 억제, Cas9로 S. alvi 접착 유전자 knockout을 시연. 이 시스템의 전제는 꿀벌 장의 예외적 단순성 — Martinson, Engel & Moran(PNAS 2012, doi:10.1073/pnas.1202970109)에 따르면 8개 phylotype이 일벌 장세균 서열의 99% 이상(“more than 99% of all bacterial sequences detected in the worker bees’ intestines”)을 차지하고, Kwong & Moran(2016)은 5개 핵심 속을 유럽꿀벌에서 95% 이상으로 본다.
분수령 — dsRNA/RNAi Science 논문(2020). Leonard SP, Powell JE, Perutka J, Geng P, Heckmann LC, Horak RD, Davies BW, Ellington AD, Barrick JE, Moran NA. “Engineered symbionts activate honey bee immunity and limit pathogens.” Science 2020;367(6477):573–576. DOI 10.1126/science.aax9039. S. alvi wkB2를 두 개의 마주보는(inverted) 프로모터를 가진 플라스미드(pDS 계열)로 조작해 dsRNA를 지속 생산, 숙주 RNAi를 유도.
- 정착·지속: 500 CFU 접종으로도 정착, 5일 후 ~5.0×10⁷ CFU, 최소 15일간 dsRNA 발현·기능 유지(“gene expression could be blocked for at least 15 days”).
- 개념 증명(숙주 유전자): 인슐린 수용체 InR1을 표적한 pDS-InR1로 다부위·다일간 발현 억제; 저농도 sucrose 감수성 증가, 체중 증가(10·15일차 유의). (직접 dsRNA 뇌 주입은 <1일 일시적 억제였던 것과 대조.)
- DWV(변형날개바이러스): pDS-DWV2 정착 벌은 DWV 주입 후 생존이 유의하게 향상. 단, Science 논문 본문은 백분율이 아니라 생존곡선으로 보고한다 — “pDS-DWV2 significantly improved survival of virus-injected bees … \\\*P<0.001 (Wald test) … Total N = 980 bees, sourced from three separate hives.” UT Austin 보도자료가 이를 “10일차 생존 36.5% 상승”으로 요약했다(즉 36.5%는 기관 보도자료 수치이며 논문 본문 인용값이 아님).
- Varroa 응애: 14개의 필수 Varroa 유전자 서열을 연결한 pDS-VAR 정착 벌을 먹은 응애는 대조군보다 빨리 사망(보도자료 요약 “10일차까지 약 70% 더 높은 사망 확률”, 총 253마리). 역시 본문은 생존곡선으로 보고.
- 논평/전망: Paxton의 Science Perspective가 동반. 회의적 시각의 대표는 Nazzi F, “Commentary: Engineered symbionts activate honey bee immunity and limit pathogens,” Front. Ecol. Evol. 8:538520(2020년 9월 22일, doi:10.3389/fevo.2020.538520) — 단독 저자 논평으로 “we see potential pitfalls in such technology driven approaches”라 명시하며, 이 방법이 주로 phoretic(성충 부착) 단계 응애에만 작용하고 번식은 봉방 안 preimaginal 단계에서 일어난다는 점, 응애의 적응(저항성 진화) 가능성을 지적했다.
후속·확장.
- FUGUES 프로토콜. Leonard et al., “Honey bee functional genomics using symbiont-mediated RNAi,” Nature Protocols 2022(및 bioRxiv 2022.04.22.489157). Golden Gate로 dsRNA 발현 플라스미드를 만들어 S. alvi에 전달, 지속적 RNAi로 벌 기능유전체학 수행하는 표준 절차. 진사회성 벌에서 정통 정방향 유전학이 어렵다는 한계를 우회.
- SnODIFY. “Single-step genome engineering in the bee gut symbiont Snodgrassella alvi,” bioRxiv 2023.09.19.558440. 전기천공+상동재조합 1단계로 유전자 knockout/knock-in(7개 단일유전자 결손주 확보). 접합 기반 Cas9 방식의 복잡성·off-target을 회피. (이 계열은 이후 본 2026 센서 논문의 염색체 통합 파이프라인의 토대가 된다.)
- Nosema/Vairimorpha 제어. “Engineered gut symbiont inhibits microsporidian parasite and improves honey bee survival,” PNAS 2023;120, DOI 10.1073/pnas.2220922120. S. alvi wkB2가 Nosema (Vairimorpha) ceranae의 필수 유전자(SSP, PTP1)를 표적하는 dsRNA를 발현해 감염·생존 개선. pDS-Nosema vs pDS-GFP 대조.
- 최신 이중 표적(2025–2026 전후). “Engineered gut symbiont targets mite and microsporidian parasites and improves honey bee survival”(PubMed 41538018). Varroa와 Nosema를 동시 표적하는 dsRNA를 발현하는 S. alvi가 동시 감염 시 생존을 45.6% 개선; 조작 균주가 합사(co-housing)로 어린 벌 52%·늙은 벌 16%에 전파(사회적 전파 정량화).
- 로잔 바이오센서 계열. Chhun et al. 2024(IPTG 센서, 비침습 분변 샘플링 + 광숙주 플라스미드 모음)→2026(본 논문, 아라비노스·염색체 통합·저강도 프로모터). 이 계열은 “방제”가 아니라 “측정·진단” 방향의 조작.
- 살충제 해독(개념/특허 단계). 꿀벌은 해독 유전자(P450 등)가 상대적으로 빈약. 장 미생물총이 P450 발현 조절로 해독에 기여한다는 보고(Wu et al., Microbial Biotechnology 2020)와, 네오니코티노이드 분해 공생균을 도입/조작한다는 특허(US 10086024 등)가 있으나, 핵심 균주들이 imidacloprid를 실질 분해하지 못한다는 음성 결과도 병존. 내생균이 clothianidin을 대사한다는 보고(PMC8949661)는 있으나 조작 사례는 아직 개념 단계. 종합 리뷰: “Symbiont-Mediated Detoxification of Xenobiotics in Honey Bees,” Microbial Biotechnology 2026, DOI 10.1111/1751-7915.70415 — 해독을 holobiont 형질로 보고 engineered symbiont를 “living bioreactor”로 제안하되 HGT 방지·biocontainment 선행을 요구.
행동·인지에 대한 벌 미생물총 연구(조작 이전의 기반).
- Zheng et al. 2017(PNAS): 미생물총이 sucrose 감수성·인슐린 신호에 영향.
- Cabirol et al. “A defined community of core gut microbiota members promotes cognitive performance in honey bees,” PNAS(bioRxiv 2023.01.03.522593): 5속 정의공동체(BeeCom: Gilliamella, Snodgrassella, Bombilactobacillus Firm-4, Lactobacillus Firm-5, Bifidobacterium)가 후각 학습·단기기억(PER conditioning)을 향상; Gilliamella 또는 Snodgrassella 결손 시 단기기억 손상. Snodgrassella 결손은 알라닌·anthranilic acid·tyramine·5-hydroxylysine 등 아미노산 대사물 변화 동반.
- Zhang, Mu et al. 2022: 무균 벌의 후각 학습·기억·sucrose 감수성 저하. Lactobacillus Firm-5가 tryptophan 대사(장→혈림프→뇌 신경활성 대사물)로 학습·기억 조절.
- Liberti et al. 2022: 미생물총이 사회적 상호작용에 영향. 또한 최근 Nature Communications(s41467-025-67586-8)는 장미생물총이 도파민 경로를 통해 회피 학습·기억을 조절함을 보고.
- 종합 리뷰: “Neuroactive metabolites modulated by the gut microbiota in honey bees,” Molecular Microbiology(DOI 10.1111/mmi.15167).
III. Paratransgenesis의 지적 계보 (다른 곤충)
용어와 기원. “Paratransgenesis”(공생체 형질전환을 통한 매개곤충 조작)는 Beard·Durvasula·Richards 그룹의 Chagas 연구에서 확립됐다. Beard et al. 1992(Am J Trop Med Hyg 46:195)가 Rhodnius prolixus의 방선균 공생체 Rhodococcus rhodnii를 shuttle plasmid로 형질전환. Durvasula et al. 1997(PNAS 94:3274)이 항균펩티드 cecropin A를 발현시켜 장 내 Trypanosoma cruzi를 제거/100배 감소. Durvasula et al. 1999(Med Vet Entomol 13:115)은 인공 분변 펠릿 CRUZIGARD로 전달을 시연(항체 단편 rDB3 발현 — 곤충 내 기능성 포유류 항체 단편 최초 발현). 이후 Arthrobacter β-1,3-glucanase 등 다른 effector로 확장(Parasites & Vectors 2013, 6:65). 리뷰: Beard, Cordón-Rosales, Durvasula, Annu Rev Entomol 2002;47:123.
말라리아 모기(Anopheles).
- Pantoea agglomerans(Jacobs-Lorena 그룹): Wang et al. 2012(PNAS 109, DOI 10.1073/pnas.1204158109). 대장균 HlyA 분비계로 anti-Plasmodium effector(scorpine, (EPIP)₄, anti-Pbs21 scFv, SM1 등) 분비, P. falciparum·P. berghei 발달을 최대 98% 억제, 유병률 최대 84% 감소. 단, 개체군 확산 drive 기전은 없음.
- Serratia AS1(Wang, Jacobs-Lorena): Wang et al. 2017(Science 357:1399, DOI 10.1126/science.aan5478). Anopheles 난소에서 분리한 AS1이 중장·난소·수컷 부속샘을 안정 정착, 교미·경란 전파로 개체군을 빠르게 확산(5% 접종→다음 세대 100%). anti-Plasmodium effector 분비 시 P. falciparum 억제, 적합도 영향 미미. 후속: “Self-limiting paratransgenesis”(PLOS NTD 2020, journal.pntd.0008542)에서 플라스미드 소실·HGT 극희소성으로 “리콜(recall)” 가능성 제시; 환경 지속·전파 동역학 연구(Appl Environ Microbiol 2025, DOI 10.1128/aem.01840-25).
- Asaia(Favia 그룹): Favia et al. 2007(PNAS)이 Anopheles stephensi의 우점 공생 acetic acid 세균 Asaia를 특성화(수직·수평·성적 전파, 배양·형질전환 용이). anti-Plasmodium 분비 조작(PLOS ONE 2015, DOI 10.1371/journal.pone.0143541; scorpine-alkaline phosphatase, siderophore receptor·YVTN β-propeller 분비신호). semi-field 대형 케이지 파일럿(Parasites & Vectors 2016). Asaia는 면역 프라이밍으로도 P. falciparum 억제(Frontiers in Genetics 2019). 다만 A. gambiae/coluzzii 야외 채집에서는 Asaia와 P. falciparum 발달 간 상관 부재 보고(PMC11619320)로, 종·환경 의존성이 큼.
- 대조 사례 — Wolbachia와 Metarhizium. Wolbachia(wMel/wAlbB, World Mosquito Program)는 유전자 조작이 아니라 transinfection이라는 점에서 엄밀히는 paratransgenesis가 아님(개념적 대조군). St. Leger 그룹의 조작 곰팡이 Metarhizium(scorpion toxin/anti-Plasmodium 발현, Science 2011 계열)은 세균 대신 진균을 쓰는 변주. (이 두 항목은 본문 내 검색으로 직접 원문 확인은 못 했으며 2차 문헌 기반으로 서술.)
체체파리(Glossina)와 Sodalis. Aksoy 그룹이 이차 공생체 Sodalis glossinidius를 anti-trypanosome 전달체로 제안. 체체파리는 태생(viviparous)이라 생식선 형질전환이 불가능해 paratransgenesis가 특히 매력적. De Vooght·Van Den Abbeele 그룹: 기능성 anti-trypanosome nanobody(Nb) 발현·분비(Microbial Cell Factories 2012;11:23, 2014;13:156), Nb_An46 발현주 특성화, Nb_88은 중장 감염 유의 억제·Nb_19는 역설적으로 정착 증가(PMC8939806). 안정 정착 개선(BMC Microbiology 2018). 최근 TCTP·cecropin 후보 평가(PubMed 40090966). 초기 유전조작 도구 확립: Pontes & Dale, lambda-red 조작(AEM 2011).
Pierce병 매개충(sharpshooter)과 Alcaligenes/Pantoea. Miller·Lampe·Lauzon 그룹이 유리날개매미충(Homalodisca vitripennis/coagulata)의 전장 공생체 Alcaligenes xylosoxidans denitrificans를 anti-Xylella fastidiosa scFv 발현체로 조작(2000년대 초 CDFA Pierce’s Disease proceedings 다수). 이 균이 병원체와 같은 cibarium 니치를 최대 5주간 정착함을 dsRed로 시연(Current Microbiology 2003, 2004). 이후 인체 병원성(nosocomial) 우려로 EPA 승인된 grape endophyte Pantoea agglomerans E325로 전환, 모의 포장 조건에서 전달 개념 증명(BMC Biotechnology 2015, DOI 10.1186/s12896-015-0175-3).
농업 해충. Diaphorina citri(감귤녹화병 HLB 매개)에서는 CLas(Candidatus Liberibacter asiaticus)와의 상호작용·RNAi 표적 연구가 활발하나, 공생체 조작 방제는 아직 개념·전임상 단계(dual-action 표적 bioRxiv 2022.02.07.479449 등). Bactrocera/Ceratitis 과실파리, 총채벌레, 콜로라도감자잎벌레, 메뚜기, 흰개미 등은 symbiont-mediated RNAi 리뷰에서 잠재 표적으로 논의되나 대부분 proof-of-concept 이하.
IV. 초파리 — 기전 해상도의 상보 모델
성장·대사 (insulin/IGF, TOR).
- Shin SC, Kim S-H, You H, Kim B, Kim AC, Lee K-A, Yoon J-H, Ryu J-H, Lee W-J. “Drosophila microbiome modulates host developmental and metabolic homeostasis via insulin signaling.” Science 2011;334(6056):670–674. Acetobacter pomorum의 PQQ 의존 알코올탈수소효소(PQQ-ADH) 활성이 숙주 IIS(insulin/IGF signaling)를 조절. PQQ-ADH 변이균 단독정착 벌레는 발달률·체구·대사·장줄기세포 활성 이상; DILP 과발현 또는 acetic acid 보충으로 회복. 세균 특정 유전자 결손으로 숙주 표현형을 못박은 초기 대표 사례.
- Storelli G, Defaye A, Erkosar B, Hols P, Royet J, Leulier F. “Lactobacillus plantarum promotes Drosophila systemic growth by modulating hormonal signals through TOR-dependent nutrient sensing.” Cell Metab 2011;14:403–414. (단, “L. plantarum이 BCAA를 통해 성장 촉진”이라는 후대의 요약은 논쟁적 — 원 논문에 BCAA 직접 증거가 없다는 비판이 Science Signaling 2012에 실림. 주의해 인용할 것.)
행동·신경.
- Schretter CE, Vielmetter J, Bartos I, Marka Z, Marka S, Argade S, Mazmanian SK. “A gut microbial factor modulates locomotor behaviour in Drosophila.” Nature 2018;563(7731):402–406. 무균/항생제 벌레는 과활동성(hyperactive). Lactobacillus brevis의 xylose isomerase(Xi) 단독으로 정상화. Xi가 trehalose 등 당 수준을 조절→octopamine 뉴런 활성 조절로 보행 제어. 흥미롭게도 암컷에서만 효과. (포유류에는 octopamine 뉴런이 없으나 대응물 noradrenaline이 운동을 조절.)
- Leitão-Gonçalves R, Carvalho-Santos Z, Francisco AP, Fioreze GT, Anjos M, Baltazar C, Elias AP, Itskov PM, Piper MDW, Ribeiro C. “Commensal bacteria and essential amino acids control food choice behavior and reproduction.” PLOS Biology 2017;15:e2000862. 필수아미노산 결핍은 단백질(효모) 식욕을 유발하나, Acetobacter pomorum + Lactobacilli 공동작용이 이를 억제하고 생식을 회복. 놀랍게도 숙주 아미노산 역가 변화 없이 작동(신호 기전 시사). 후속: Nature Communications 2020(41467-020-18049-9) — Ap의 lactate가 필요·충분, 교차섭식 기전.
- 초파리 짝짓기 선호 논쟁(재현 실패 명시). Sharon G, Segal D, Ringo JM, Hefetz A, Zilber-Rosenberg I, Rosenberg E. “Commensal bacteria play a role in mating preference of Drosophila melanogaster.” PNAS 2010;107:20051. 전분 vs 당밀 사육이 동종선호 짝짓기를 유도, Lactobacillus plantarum 매개라 주장(hologenome 개념의 근거로 제시). 그러나 2013년 통계 정정(Correction) 발생(다항분포 부적합); Leftwich PT, Clarke NVE, Hutchings MI, Chapman T. “Gut microbiomes and reproductive isolation in Drosophila,” PNAS 2017;114:12767의 잘 통제된 재현 실험은 생식 격리 없음을 보고. Rosenberg 측은 methylparaben 농도 차이를 반박 논거로 제시(PNAS 2018 exchange, Obadia et al. 포함). 즉 이 발견은 논쟁적이며 핵심 주장은 재현되지 않았다 — hologenome 담론의 과장 위험을 보여주는 교육적 사례.
초파리 장세균을 실제로 유전자 조작한 사례. 특정 대사물 규명을 위해 세균 변이체(PQQ-ADH mutant, Xi 정제/공급, acetate/butyrate 생산 결손주) 사용이 표준. 최근 “Gut microbial metabolites link dietary history to appetite regulation”(PubMed 40917010): acetate 못 만드는 Acetobacter, butyrate 못 만드는 Lactiplantibacillus 변이주로 식욕 기전을 못박음. Chaston/Newell 그룹의 arrayed mutant library(Acetobacter LPS 유전자, G3 2018)도 유전자→정착 인과를 확립. Drosophila suzukii(해충) 방제용 공생체 조작은 개념적으로 논의되나 성숙 단계 아님.
신경펩티드·신경면역 접점. 벌·초파리 모두에서 미생물총→insulin/IIS, octopamine/tyramine, tryptophan-kynurenine 축이 반복 등장한다. 사용자의 관심사(SIFamide, sNPF, neuro-immune)와 직접 연결되는 조작 연구는 아직 부재하나, sNPF–insulin 연결과 tyramine/octopamine 조절은 접점 후보다. (이 문단은 명시적 원문 근거보다 기존 신경생물학 지식과의 연결 제안임을 밝힌다.)
V. 기술·개념 종합
왜 벌 장이 유난히 다루기 좋은가. 8–10개 핵심 phylotype이 서열의 95–99% 이상을 차지(Martinson et al. 2012), 숙주 특이적, 수직·사회적 전파, 배양 가능, gnotobiotic 재구성 가능. S. alvi는 keystone 종(산소 고갈로 혐기 환경 조성)이며 장벽에 밀착 정착.
전달 경로 비교.
- 조작 공생체(engineered symbiont): 지속·자가증식·저비용, 그러나 정착 경쟁·유전 불안정·biocontainment 부담.
- 직접 dsRNA 급이: 단순하나 고비용·환경 분해 빠름·반복 투여 필요.
- 숙주 형질전환: 정밀하나 진사회성 벌·태생 tsetse엔 난망.
- Gene drive: 강력한 확산이나 되돌리기 어려움·규제·생태 위험.
규제·생물안전. GEM(유전자변형 미생물) 환경 방출은 EPA/USDA/EFSA 규제 대상. 핵심 우려는 HGT(수평 유전자 전달)와 환경 잔류. 대응: 합성 auxotrophy, kill switch(Deadman/Passcode 등 — US 11459573), Xeno-DNA 봉쇄, DNA watermark. NIH의 재조합 DNA 지침(2013)은 escape frequency 목표를 10⁻⁸(세포 10⁸개당 1개)로 제시한다(Moon et al., Adv Drug Deliv Rev 2025;221:115578 요약: “the escape rate of GEMs… should be 10⁻⁸ according to NIH guidelines”). Serratia AS1의 self-limiting 설계(플라스미드 소실·HGT 극희소)가 규제 친화적 사례.
비판·회의 관점. (1) 포장(field) 효율 — 실험실 생존 개선이 군집 수준·야외로 이어질지 불확실; (2) 토착주와의 정착 경쟁; (3) off-target RNAi(비표적 화분매개자·절지동물) — 차세대 dsRNA 아카리사이드의 in silico off-target 분석(PubMed 40266823)에서 벌 관련 절지동물엔 영향 없음 보고되나 사례별 평가 필요; (4) 저항성 진화(응애 적응, Nazzi 2020); (5) 생태 위험. Symbiont-mediated RNAi 종합 리뷰(ScienceDirect S2589014X26002690)는 “야외 즉시 대체재가 아니라, 기전 검증·생태 봉쇄·사례별 규제가 선행되어야 할 유망 플랫폼”으로 결론.
Recommendations
공부·집필 관점의 단계별 정리:
- 에세이 도입은 “센서 vs 무기” 구분으로 시작하라. 지정 논문이 방제 무기가 아니라 측정 도구라는 점을 첫 문단에서 못박아야 독자의 오해를 막는다. 2020 Science(무기) → 2024/2026 로잔(센서)의 대비가 서사의 축.
- 문제의 시급성은 최신 손실 통계로 설정하라. 미국 관리 봉군은 2024년 4월~2025년 4월 사이 55.6%가 폐사했고(Auburn University/Apiary Inspectors of America 2024-25 U.S. Beekeeping Survey, 겨울 손실 40.2%; “the estimated 55.6% colony losses are at their highest loss rate since the annual survey collection began in 2010”), 이는 벌 미생물총 조작 연구에 쏟는 관심의 배경이다.
- 기전 깊이는 초파리에서 빌려라. 벌 논문은 “무엇을”에 강하고 “어떻게”에 약하다. Shin 2011의 PQQ-ADH→acetate→IIS, Schretter 2018의 Xi→trehalose→octopamine 회로를 나란히 놓으면 벌의 tryptophan/tyramine 결과가 기전적으로 납득된다.
- 재현 논쟁을 반드시 포함하라. Sharon 2010 짝짓기 선호는 재현 실패(Leftwich 2017)를 명시. hologenome 담론의 과장 위험을 보여주는 교육적 사례.
- 정량치는 출처 등급을 표기하라. 36.5%(DWV)·70%(Varroa)는 UT Austin 보도자료 수치이고 논문 본문은 생존곡선(p<0.001, Wald test, N=980)으로 보고했음을 각주로 구분.
후속 조사가 필요하면 바뀌는 기준: Metarhizium(St. Leger, Science 2011)과 Wolbachia WMP 최신 현장 데이터, D. suzukii 공생체 조작은 이번에 원문 직접 확인을 못 했으니, 정식 인용 전 원문 DOI 확인이 필요하다.
Caveats
- 지정 논문 성격: URL 논문은 정상 검색·전문 확보됨. 다만 사용자가 프롬프트에서 암시한 “치료/방제 조작”과 달리 바이오센서(측정) 논문이다. 이 불일치를 본문에 명시했다. (bioRxiv 프리프린트 2025.11.28.691108로도 공개되어 있다.)
- 정량치 출처: Leonard 2020의 36.5%/70%는 보도자료 기반. 논문 본문은 백분율 대신 통계적 생존차로 보고.
- 2차 문헌 의존 항목: Metarhizium(St. Leger), Wolbachia WMP, Storelli 2011의 BCAA 해석, D. suzukii 조작, 신경펩티드 접점 문단은 원문 직접 확인이 아닌 2차 문헌·기존 지식 기반이다.
- 연도 표기: 일부 후속 논문(이중 표적 Varroa/Nosema)은 PubMed 등재만 확인, 정식 서지 완성도는 낮을 수 있다.
- MSI 해상도: 본문의 “5–20 µm” 수치는 상용 MALDI-MSI 일반값이며, 특정 장비·모드에 따라 편차가 크다.
참고문헌 (주요)
- Chhun A, Quinn A, Pérez-Lorente AI, Steiner T, Zoppi F, Nguyen THG, Engel P, Schaerli Y. An engineered bacterial symbiont maps micron-scale sugar gradients in the honeybee gut. PLOS Biology 2026;24(9):e3003997. DOI 10.1371/journal.pbio.3003997.
- Chhun A, Moriano-Gutierrez S, Zoppi F, Cabirol A, Engel P, Schaerli Y. An engineered bacterial symbiont allows noninvasive biosensing of the honey bee gut environment. PLOS Biology 2024;22(3):e3002523. DOI 10.1371/journal.pbio.3002523.
- Martinson VG, Moran NA, et al. (핵심 미생물총 조성) PNAS 2012. DOI 10.1073/pnas.1202970109.
- Leonard SP, et al. Genetic Engineering of Bee Gut Microbiome Bacteria with a Toolkit for Modular Assembly of Broad-Host-Range Plasmids. ACS Synth Biol 2018;7(5):1279–1290. DOI 10.1021/acssynbio.7b00399.
- Leonard SP, et al. Engineered symbionts activate honey bee immunity and limit pathogens. Science 2020;367(6477):573–576. DOI 10.1126/science.aax9039.
- Nazzi F. Commentary: Engineered symbionts activate honey bee immunity and limit pathogens. Front Ecol Evol 2020;8:538520. DOI 10.3389/fevo.2020.538520.
- Leonard SP, et al. Honey bee functional genomics using symbiont-mediated RNAi (FUGUES). Nature Protocols 2022. (bioRxiv 2022.04.22.489157.)
- Single-step genome engineering in the bee gut symbiont Snodgrassella alvi (SnODIFY). bioRxiv 2023.09.19.558440.
- Engineered gut symbiont inhibits microsporidian parasite and improves honey bee survival. PNAS 2023;120. DOI 10.1073/pnas.2220922120.
- Cabirol A, et al. A defined community of core gut microbiota members promotes cognitive performance in honey bees. PNAS. (bioRxiv 2023.01.03.522593.)
- Beard CB, et al. Transformation of an insect symbiont and expression of a foreign gene in the Chagas’ disease vector Rhodnius prolixus. Am J Trop Med Hyg 1992;46:195.
- Durvasula RV, et al. Prevention of insect-borne disease: an approach using transgenic symbiotic bacteria. PNAS 1997;94:3274.
- Wang S, et al. Fighting malaria with engineered symbiotic bacteria from vector mosquitoes. PNAS 2012;109. DOI 10.1073/pnas.1204158109.
- Wang S, et al. Driving mosquito refractoriness to Plasmodium falciparum with engineered symbiotic bacteria. Science 2017;357:1399. DOI 10.1126/science.aan5478.
- Favia G, et al. Bacteria of the genus Asaia stably associate with Anopheles stephensi. PNAS 2007.
- De Vooght L, et al. Delivery of a functional anti-trypanosome Nanobody via Sodalis glossinidius. Microb Cell Fact 2012;11:23; 2014;13:156.
- Shin SC, et al. Drosophila microbiome modulates host homeostasis via insulin signaling. Science 2011;334:670. DOI 10.1126/science.1212782.
- Storelli G, et al. Lactobacillus plantarum promotes Drosophila systemic growth via TOR. Cell Metab 2011;14:403.
- Schretter CE, et al. A gut microbial factor modulates locomotor behaviour in Drosophila. Nature 2018;563:402. DOI 10.1038/s41586-018-0634-9.
- Leitão-Gonçalves R, et al. Commensal bacteria and essential amino acids control food choice behavior and reproduction. PLOS Biology 2017;15:e2000862. DOI 10.1371/journal.pbio.2000862.
- Sharon G, et al. Commensal bacteria play a role in mating preference of Drosophila melanogaster. PNAS 2010;107:20051. (Correction 2013.)
- Leftwich PT, et al. Gut microbiomes and reproductive isolation in Drosophila. PNAS 2017;114:12767. DOI 10.1073/pnas.1708345114.
- Symbiont-Mediated Detoxification of Xenobiotics in Honey Bees. Microbial Biotechnology 2026. DOI 10.1111/1751-7915.70415.
You must be logged in to post a comment.