
보통 과학자의 노트
프롤로그 — 과일 그릇 앞에서
여름 부엌의 과일 그릇 위를 맴도는 작은 초파리를 본 사람이라면 누구나 이 곤충이 ‘과일을 좋아한다’고 생각한다. 그러나 초파리 유전학을 업으로 삼은 사람의 눈에는 조금 다르게 보인다. 초파리는 과일을 먹으러 오는 것이 아니라, 과일 위에서 발효하는 효모(yeast, 단세포 진균)를 먹으러 온다. 2012년 스웨덴 룬드 대학의 파울 베처(Paul Becher) 연구팀이 《Functional Ecology》에 발표한 우아한 실험은 이 점을 분명히 했다. 껍질을 벗기지 않은 포도와 포도즙, 그리고 그 위에 자란 Saccharomyces cerevisiae(양조·제빵 효모)를 각각 준비해 초파리의 반응을 비교했더니, 유인과 산란(알을 낳는 행동), 유충 발달을 결정한 것은 과일 자체가 아니라 효모였다. 논문의 결론 문장은 인상적이다. “효모 냄새가 파리–과일–효모 관계를 성립시키는 결정적 신호”라는 것이다.
이 사소해 보이는 사실에서 이야기를 시작하려 한다. 우리 몸의 미생물 생태계를 이야기할 때 우리는 거의 언제나 세균(박테리아)만을 떠올린다. 그러나 세균 곁에는 언제나 곰팡이가 있었다. 장내 곰팡이 군집, 이른바 마이코바이옴(mycobiome)은 미생물학의 오랜 사각지대였다. 최근 인도 예네포야 연구센터의 에브라힘, 라구, 다스가 《Antonie van Leeuwenhoek》(2026)에 발표한 리뷰 논문 〈The underexplored mycobiome: insights from Drosophila into human health and disease〉1는 바로 이 사각지대를 초파리라는 렌즈로 들여다보자고 제안한다. 초파리 유전학자로서 나는 이 제안에 절반은 크게 공감하고, 절반은 신중하게 선을 긋고 싶다. 이 글은 그 공감과 유보의 기록이다.
Ebrahim, R.A., Raghu, S.V. & Das, S.P. The underexplored mycobiome: insights from Drosophila into human health and disease. Antonie van Leeuwenhoek 119, 202 (2026). https://doi.org/10.1007/s10482-026-02412-9
곰팡이는 왜 잊혔는가 — 인간 장내 마이코바이옴의 실체
먼저 규모의 문제를 정직하게 짚자. 인간의 장에 사는 곰팡이는 전체 미생물 중 극히 일부다. 2018년 아우크퉁(Auchtung) 등이 《mSphere》에서 정리했듯, 성인 대변의 메타지놈 서열 중 곰팡이 종에 대응하는 것은 대략 0.01~0.1%에 불과하다. 다만 곰팡이의 유전체가 세균보다 3~10배 크다는 점을 고려하면, 장 속 10¹³개가 넘는 미생물 가운데 곰팡이 세포는 대략 10억 개 규모로 추정된다. 숫자로만 보면 미미하지만, 생물학에서 ‘희소함’이 ‘무의미함’을 뜻하지는 않는다.
곰팡이가 오래 잊힌 데에는 방법론적 이유가 크다. 세균을 식별할 때 쓰는 16S rRNA 유전자 서열분석에 대응하여, 곰팡이는 주로 ITS(internal transcribed spacer, 리보솜 RNA 유전자 사이의 내부 전사 간격) 영역을 읽는다. 그런데 ITS 기반 분석은 표준화가 늦었고, 참조 데이터베이스가 불완전하며, 곰팡이 세포벽이 두꺼워 DNA 추출 효율이 종마다 다르고, 시약·환경에서 유래한 오염 신호에 취약하다. 이 때문에 인간 장내 마이코바이옴 연구는 재현성 문제로 자주 흔들려 왔다.
그럼에도 큰 그림은 있다. 인간 마이크로바이옴 프로젝트(HMP)의 건강한 코호트 317명의 대변을 분석한 내시(Nash) 등의 2017년 《Microbiome》 연구는 장내 마이코바이옴이 세균 군집보다 다양성이 현저히 낮고 효모가 지배적임을 보였다. Saccharomyces cerevisiae, Malassezia restricta, Candida albicans의 OTU(분류학적 단위)가 각각 표본의 96.8%, 88.3%, 80.8%에서 검출되었다. 세 속 — Saccharomyces(사카로마이세스), Malassezia(말라세지아), Candida(칸디다) — 이 인간 장내 곰팡이의 주역인 셈이다.
그런데 여기서 이 분야의 가장 근본적인 논쟁이 등장한다. 이 곰팡이들은 정말로 장에 ‘정착해 사는’ 거주자(colonizer)인가, 아니면 음식과 입에서 흘러들어와 소화관을 ‘통과하는’ 나그네(passenger)인가? 2018년 베일러 의대의 아우크퉁(Auchtung) 등이 《mSphere》에 내놓은 답은 상당히 도발적이었다. 그들은 건강한 성인들에게 곰팡이 조성이 알려진 통제식이를 먹이고 대변·타액·음식의 곰팡이를 추적했는데, 대변에서 검출된 거의 모든 곰팡이가 음식이나 구강에 이미 존재하는 것으로 설명되었다. 대변 속 S. cerevisiae DNA 양은 빵 등 곰팡이가 풍부한 음식 섭취 횟수와 일치했고, 장 환경을 모방한 조건에서 S. cerevisiae는 7일간 증식하지 못했다. 즉 건강한 성인의 장에서 흔히 검출되는 곰팡이의 상당수는 지속적 거주자가 아니라 식이에서 유래한 일시적 통과자라는 것이다. 이 발견은 “칸디다 과증식”을 둘러싼 각종 민간 낭설에 찬물을 끼얹는, 방법론적으로 건강한 회의주의였다.
물론 반대편 증거도 견고하다. 곰팡이가 단지 나그네에 불과하다면, 왜 곰팡이를 인식하는 면역 수용체의 결함이 질병과 연결되겠는가? 2012년 일리에프(Iliev) 등이 《Science》에 발표한 기념비적 연구는, 곰팡이 세포벽의 β-글루칸을 감지하는 C형 렉틴 수용체 Dectin-1이 없는 생쥐가 화학적으로 유도한 대장염에 훨씬 취약함을 보였고, 사람의 Dectin-1 유전자(CLEC7A)의 다형성(SNP rs2078178)이 대장절제가 필요한 내약성 궤양성 대장염과 강하게 연관됨을 지적했다. 곰팡이 신호전달의 핵심 어댑터인 CARD9 유전자의 변이는 염증성 장질환(IBD)의 잘 알려진 위험인자다. 2019년 리몬(Limon) 등은 《Cell Host & Microbe》에서, 피부 상재 효모로 알려졌던 Malassezia restricta가 크론병 환자의 장 점막에 풍부하며, CARD9 의존적으로 대장염을 악화시킴을 보였다. 2022년 레오나르디(Leonardi) 등이 《Cell》에 발표한 연구는 한 걸음 더 나아가, 점막 부착 곰팡이가 장의 Th17 면역(17형 도움 T세포 반응)을 유도해 장벽 기능을 강화할 뿐 아니라, IL-17이 신경세포에 직접 작용해 생쥐의 사회성 행동까지 촉진한다고 보고했다. 곰팡이–면역–뇌를 잇는 축의 존재 가능성을 시사한 것이다.
내 판단은 이렇다. ‘거주자냐 나그네냐’는 이분법 자체가 부분적으로 잘못 설정되었다. 대부분의 장내 곰팡이는 낮은 밀도로 오가는 일시적 통과자에 가깝지만, 그중 일부 — 특히 점막에 부착하는 소수 — 는 밀도가 낮아도 면역계와 유의미하게 상호작용한다. 문제는 ‘얼마나 많으냐’가 아니라 ‘누가, 어디서, 어떤 수용체와 대화하느냐’다.
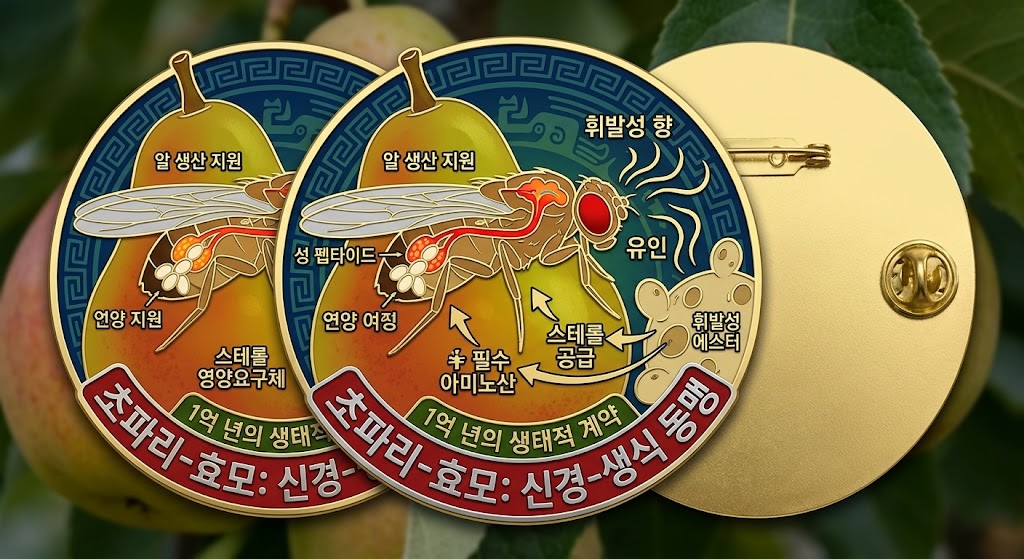
초파리와 효모 — 1억 년의 생태적 동맹
이제 초파리로 돌아오자. 초파리와 효모의 관계는 실험실의 편의적 조합이 아니라 자연에서 다듬어진 오래된 동맹이다. 앞서 언급한 베처의 실험이 보여주었듯, 효모는 초파리에게 단순한 먹이가 아니라 필수 영양의 원천이다. 효모는 초파리가 스스로 만들지 못하는 아미노산, 비타민 B군, 지방산, 그리고 무엇보다 스테롤(sterol)을 공급한다. 초파리는 곤충 일반이 그렇듯 콜레스테롤 등 스테롤을 합성하지 못하는 스테롤 영양요구체(auxotroph)여서, 탈피 호르몬(엑디손)의 원료가 되는 스테롤을 식이 미생물에 의존한다. 효모가 없으면 초파리는 온전히 성장하지 못한다.
관계는 일방적이지 않다. 2014년 벨기에 KU 뢰번의 페르스트레펀(Verstrepen) 연구팀이 《Cell Reports》에 발표한 연구는 이 상리공생의 분자적 실체를 아름답게 드러냈다. 효모의 ATF1 유전자는 아이소아밀 아세테이트, 에틸 아세테이트 같은 휘발성 아세트산 에스터 — 맥주와 와인의 과일향을 내는 바로 그 물질 — 를 만든다. ATF1을 제거한 돌연변이 효모는 이 향을 잃고, 초파리의 안테나엽(antennal lobe, 후각 1차 중추)을 예전만큼 자극하지 못하며, 결과적으로 초파리에게 덜 매력적이 된다. 향을 잃은 효모는 파리를 유인하지 못하므로 파리에 의한 분산(dispersal)도 줄어든다. 요컨대 효모는 향으로 파리를 부르고, 파리는 그 대가로 움직이지 못하는 효모를 새로운 장소로 옮겨준다. 냄새를 매개로 한 곤충과 미생물의 계약인 셈이다.
이 동맹은 초파리의 번식 행동 깊숙이까지 배선되어 있다. 2010년 히베이루(Ribeiro)와 딕슨(Dickson)이 《Current Biology》에 보고했듯, 단백질이 결핍된 암컷 초파리는 효모를 선택적으로 갈망한다. 더 흥미로운 것은 짝짓기의 효과다. 교미 시 수컷이 전달하는 성 펩타이드(sex peptide)가 암컷의 성 펩타이드 수용체(SPR)에 작용하면, 암컷은 알 생산이라는 앞으로의 수요를 예견하듯 효모(단백질) 섭취를 늘린다. 2015년 워커(Walker) 등은 이 효모 갈망이 옥토파민(무척추동물의 노르아드레날린 대응물) 신호를 요구함을 밝혔다. 생식 상태가 후각·미각과 신경내분비를 거쳐 ‘무엇을 먹을 것인가’라는 결정으로 번역되는 이 회로야말로, 곰팡이가 숙주의 뇌와 행동에 관여하는 가장 명료한 사례다. 신경펩타이드 회로와 짝짓기 행동을 연구하는 내 입장에서, 이보다 매혹적인 진입점은 드물다.
그렇다면 효모는 초파리의 장 안에 ‘사는가’? 여기서도 인간에서와 똑같은 거주자–나그네 논쟁이 반복되며, 답 또한 비슷하게 미묘하다. 2015년 호앙(Hoang), 콥(Kopp), 챈들러(Chandler)가 《PeerJ》에 던진 질문은 도발적이다. 제목부터 “S. cerevisiae는 파리–효모 관계를 연구하기에 좋은 모델인가?”이다. 그들의 지적은 뼈아프다. 실험실에서 압도적으로 많이 쓰이는 S. cerevisiae는 정작 야생 초파리 개체군에서는 거의 발견되지 않으며, 실험에 쓰이는 균주는 파리에서 분리된 것도 아닌 산업용 균주라는 것이다. 그들의 실험에서 섭취된 효모는 종에 따라 장내 잔류 정도가 달랐지만 — 예컨대 Hanseniaspora occidentalis는 S. cerevisiae보다 오래 머물렀다 — 결국 모든 효모가 시간이 지나며 총량이 감소했다. 장 상피가 내뿜는 활성산소종(ROS, DUOX 효소 산물)이 효모를 청소하기 때문이다. 2024년 히메네스-파디야(Jiménez-Padilla) 등이 《Journal of Experimental Biology》에 보고한 결과는 이 그림에 결정적 단서를 더한다. 무균(axenic) 초파리는 자연 미생물총을 지닌 개체(약 11.5일)보다 알에서 성체까지 느리게(약 13일) 발달하는데, 살아 있는 효모 한 종(S. cerevisiae 또는 Lachancea kluyveri)만 접종해도 발달 속도가 회복되었다. 결정적으로 효모는 살아 있어야 했다. 열처리로 죽인 효모는 발달을 3.5~4.5%만 단축한 반면, 살아 있는 효모는 14%나 앞당겼다. 효모가 단순한 영양 보충제가 아니라 숙주와 생물학적으로 상호작용하는 파트너임을 시사하는 대목이다.
왜 하필 초파리인가 — 역사·유전·면역이라는 세 겹의 이유
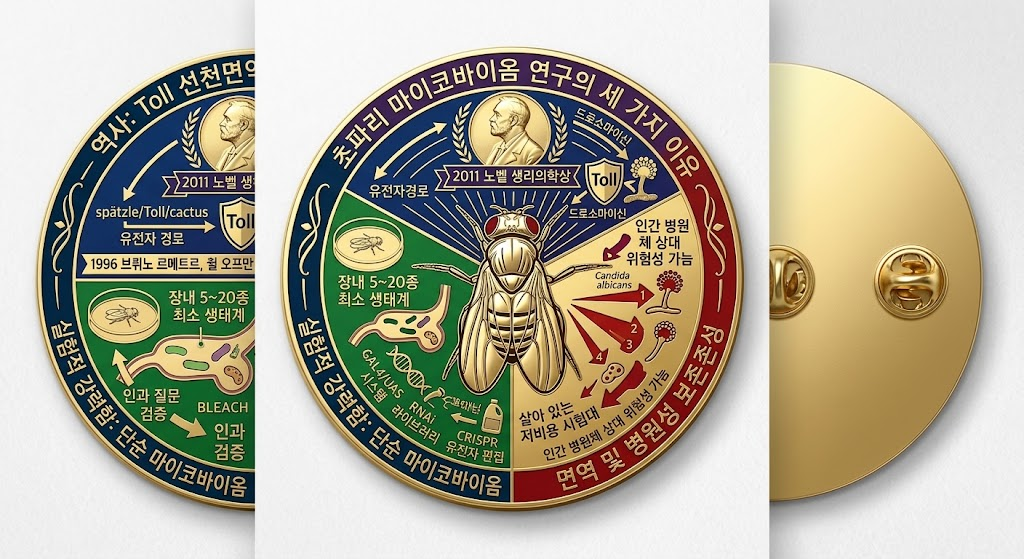
초파리가 마이코바이옴 연구에서 중요한 이유를 이해하려면, 우선 이 분야 전체가 초파리의 곰팡이 실험에서 태어났다는 역사적 사실을 알아야 한다. 1996년 브뤼노 르메트르(Bruno Lemaitre)와 쥘 오프만(Jules Hoffmann) 등이 《Cell》에 발표한 논문의 제목은 그 자체로 역사다. 〈배복(dorsoventral) 조절 유전자 카세트 spätzle/Toll/cactus가 초파리 성체의 강력한 항진균 반응을 조절한다〉. 이들은 원래 배아의 등–배 축 형성에 관여한다고 알려졌던 Toll 수용체의 신호전달이 망가진 돌연변이 초파리가 곰팡이 감염(Aspergillus fumigatus)에 속절없이 죽어가는 것을 관찰했고, 이때 항진균 펩타이드 **드로소마이신(Drosomycin)**의 발현이 사라짐을 보였다. Toll이 발생뿐 아니라 선천면역의 핵심임을 밝힌 이 발견은, 곧 포유류의 Toll 유사 수용체(TLR) 발견으로 이어졌고, 2011년 노벨 생리의학상으로 결실을 맺었다. 곰팡이에 죽어가는 초파리 한 마리가 인간 선천면역학의 문을 연 것이다. (다만 이 상의 공로 배분을 두고 제1저자였던 르메트르가 공개적으로 이견을 제기한 바 있음은, 과학사의 정직한 각주로 남겨둘 만하다.)
역사가 첫 번째 이유라면, 두 번째 이유는 실험적 강력함이다. 러딩턴과 자(Ludington & Ja)가 2020년 《PLoS Pathogens》 리뷰에서 정리했듯, 초파리의 장내 미생물 군집은 대략 5~20종으로 극히 단순하다. 인간 장의 수백~수천 종과 비교하면 거의 ‘최소 생태계’에 가깝다. 게다가 알 껍질을 표백제로 소독하는 간단한 처리(dechorionation)로 무균 초파리를 만들 수 있고, 여기에 원하는 미생물만 정해 넣어 그노토바이오틱(gnotobiotic, 미생물 조성이 완전히 규정된) 초파리를 손쉽게 제작할 수 있다. 이는 “이 곰팡이 한 종이 저 표현형을 일으키는가?”라는 인과 질문을 깨끗하게 검증할 수 있다는 뜻이다. 여기에 GAL4/UAS 표적 발현 시스템, 유전체 전반을 아우르는 RNAi 라이브러리, CRISPR 유전자 편집 같은 초파리 유전학의 무기고가 더해진다. 숙주의 어떤 유전자가 곰팡이 반응에 관여하는지 대규모로 스크리닝할 수 있고, 비용과 시간은 포유류의 극히 일부에 불과하다.
세 번째 이유는 면역과 병원성의 보존성이다. 초파리의 Toll 경로가 망가진 돌연변이는 Candida albicans, Aspergillus, Cryptococcus 같은 인간 병원성 곰팡이에 취약해지는데, 놀랍게도 Toll 결손 초파리에서 측정한 곰팡이들의 병독성 순위가 포유류에서의 순위와 상관관계를 보인다. 즉 초파리는 인간 진균 병원체의 상대적 위험성을 가늠하는 살아 있는 저비용 시험대가 될 수 있다. 항진균 이펙터의 목록도 풍부하다. 드로소마이신 외에도 보마닌(Bomanins), 바라마이신 A(Baramicin A) 같은 펩타이드가 곰팡이와 아스페르길루스 마이코톡신으로부터 초파리를 보호한다는 것이 밝혀졌다.
곰팡이가 뇌를 조종할 때 — 초파리가 특별히 잘 답하는 질문
초파리가 정말로 빛을 발하는 영역은 곰팡이와 뇌·행동의 접점이다. 곰팡이가 숙주의 뇌를 문자 그대로 장악하는 가장 극적인 사례는 ‘좀비 파리’다. 하버드의 캐럴린 엘리아(Carolyn Elya) 등이 2023년 《eLife》에 보고한 연구는, 곤충병원성 곰팡이 Entomophthora muscae에 감염된 초파리가 죽기 직전 높은 곳으로 기어올라 다리를 뻗고 죽는 이른바 ‘정상 등반(summiting)’ 행동의 신경 기전을 해부했다. 이 조작 행동은 숙주의 일주기 신경(DN1p)과 신경분비 중추인 대뇌간부(pars intercerebralis), 그리고 유충호르몬(JH)을 만드는 알라타체(corpora allata)를 필요로 했다. 흥미롭게도 곰팡이는 이 신경 구조들을 직접 파괴하지 않고 — 오히려 온전히 남겨둔 채 — 혈림프를 매개로 그 활동을 조종하는 듯 보였다. 감염된 파리의 혈림프를 건강한 파리에 주입하자 “운동성의 폭발”이 유발되었다는 관찰은, 화학적 신호에 의한 행동 조작이라는 가설을 강하게 뒷받침한다.
또 다른 최전선은 곰팡이의 뇌 침입과 신경퇴행이다. 2025년 버밍엄 대학 연구팀이 《PLoS Biology》에 발표한 싱(Singh) 등의 연구는, 곤충병원균 Beauveria bassiana가 초파리의 혈액뇌장벽(BBB)을 넘어 뇌로 들어가 신경퇴행을 일으키는 경로를 추적했다. 핵심은 반전이다. 곰팡이는 Toll-1 수용체를 자극해 정상적인 항균 펩타이드를 유도하는 한편, 같은 수용체를 통해 Sarm이라는 어댑터를 활성화한다. Sarm은 MyD88을 억제하는 ‘파괴의 스위치’로, 신경세포와 신경교세포의 죽음을 부른다. Toll-1, Weckle, Sarm을 각각 RNAi로 억제하면 세포 손실이 예방되었고, 반대로 Sarm을 과발현하면 감염 없이도 신경세포가 죽었다. 곰팡이가 숙주의 면역 신호를 역이용해 뇌를 무너뜨리는 ‘면역 회피’ 전략인 셈이다. 저자들은 인간에서도 TLR 하류의 유사한 Sarm 활성화가 신경퇴행이나 정신질환의 바탕이 될 수 있다고 조심스럽게 제안한다.
혈액뇌장벽 자체를 다루는 연구도 초파리에서 가능하다. 2020년 벤미문(Benmimoun) 등은 《Nature Communications》에서 초파리 유충 뇌 외식편(explant)에 여러 인간 병원체를 노출시키는 모델을 만들었는데, Candida glabrata와 (균사형이 아닌) C. albicans가 초파리 BBB를 통과한 반면 비병원성 S. cerevisiae는 통과하지 못했다. 이 계는 병원체가 숙주의 지질단백질(lipoprotein) 수입 기구를 가로채 장벽을 넘는다는 기전을 드러냈고, 그 핵심 인자를 생쥐에서 재확인했다. 초파리에서 얻은 기전이 포유류로 검증된 좋은 사례다.
이런 연구들이 왜 인간 마이코바이옴과 연결되는가? 앞서 본 우(Wu) 등의 2019년 《Nature Communications》 연구는, C. albicans가 생쥐의 뇌로 들어가 미세아교세포(microglia)를 활성화하고 아밀로이드 전구단백질과 Aβ 펩타이드가 축적된 육아종을 형성하며 일시적 기억 손상을 일으킴을 보였다. 곰팡이 감염과 알츠하이머병 병리 사이의 기묘한 접점을 시사한 것이다. 초파리가 제공하는 것은 바로 이런 관찰을 ‘유전적으로 분해’할 수 있는 능력이다.
어디까지 믿을 것인가 — 리뷰와 이 분야의 과장에 대하여
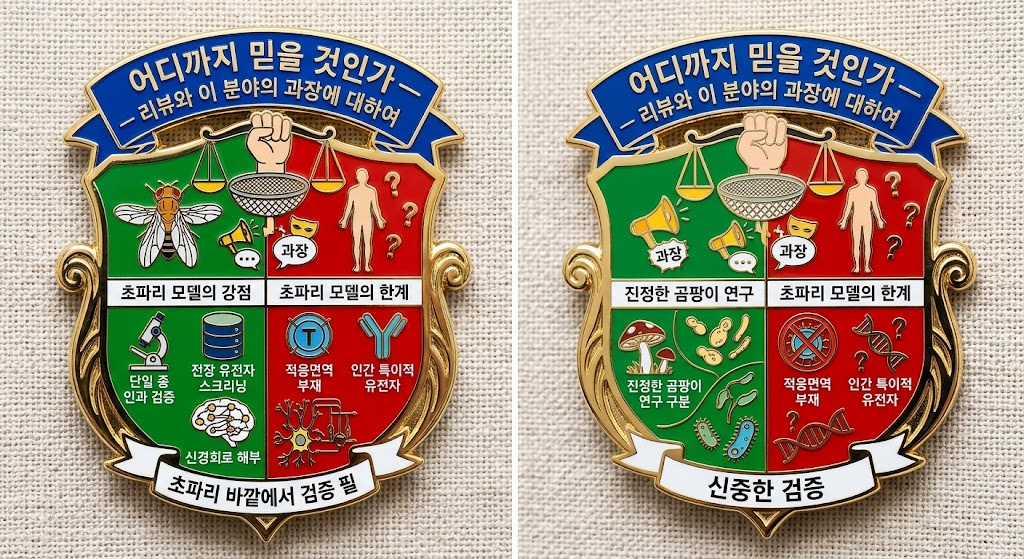
여기까지가 공감의 영역이라면, 이제 유보의 선을 그을 차례다. 좋은 리뷰 논문일수록 열정과 함께 실려 오는 과장을 걸러 읽어야 한다.
첫째, 원 리뷰가 강조하는 인간과 초파리 장내 마이코바이옴 사이의 “현저한 곰팡이 상동성(striking fungal homology)”이라는 표현에 나는 상당히 회의적이다. 두 종의 장에서 같은 속(Saccharomyces, Candida 등)이 검출되는 것은 사실이지만, 이는 깊은 진화적 상동이라기보다 두 생물이 비슷한 발효 기질과 환경을 공유한 결과일 가능성이 높다. 인간이든 초파리든 이 효모들의 상당 부분은 앞서 본 대로 식이에서 유래한 일시적 통과자다. 같은 손님이 두 집을 드나든다고 해서 두 집의 구조가 같은 것은 아니다. ‘공유된 속’을 ‘상동적 생태계’로 승격시키는 것은 논리적 비약이다.
둘째, 리뷰가 인용하는 일부 화제성 연구는 재현성 논란의 한복판에 있다. 대표적으로 2019년 아이쿠트(Aykut) 등이 《Nature》에 발표한 연구는 Malassezia가 췌장관선암(PDAC)을 촉진하며 만노스 결합 렉틴(MBL) 경로를 활성화한다고 주장해 큰 반향을 일으켰다. 그러나 2023년 플레처(Fletcher) 등은 같은 저널에 원 데이터를 재분석한 결과, 췌장 조직에서 곰팡이 서열이 극히 적었고 건강인과 환자 사이에 마이코바이옴 조성 차이를 찾지 못했다고 반박했다(원저자들은 재반박했다). 이는 저바이오매스 시료에서 미생물 신호를 읽어내는 일이 오염과 분석 방법에 얼마나 취약한지 보여주는 교과서적 사례다. 더 넓게는, 범암종 종양 마이코바이옴을 주장한 나룬스키-하지자(Narunsky-Haziza) 등의 2022년 《Cell》 연구 역시, 앞선 종양 세균총 연구(푸어 등)의 데이터 처리 방법을 일부 공유했다는 이유로 비판받았고 — 그 세균총 연구는 이후 철회되었다 — 재분석 논문들이 잇따랐다. 종양 마이코바이옴 분야 전체가 “흥미롭지만 아직 신중을 요하는” 상태라고 보는 것이 공정하다.
셋째, 신경퇴행성 질환 뇌 조직에서 곰팡이를 발견했다는 카라스코(Carrasco) 연구실의 일련의 보고(알츠하이머, 파킨슨, 다발경화증, 근위축측삭경화증에서 곰팡이 검출)는 흥미롭지만 아직 독립적으로 널리 재현되지 않았고, 인과와 방관자(bystander)를 구분하지 못한다는 근본적 한계를 안고 있다. 노화한 뇌나 면역이 약화된 뇌에서 미생물이 검출되는 것은 그 자체로는 병인을 뜻하지 않는다. 이 보고들은 ‘가설을 제기하는’ 증거이지 ‘결론을 내리는’ 증거가 아니다.
넷째, 이것은 리뷰에 대한 비판이라기보다 독자를 위한 주의사항인데 — 리뷰가 ‘마이코바이옴’이라는 우산 아래 인용하는 초파리 연구의 상당수는 사실 곰팡이가 아니라 세균 미생물총 연구다. 파킨슨병 초파리 모델의 분변 이식, 알츠하이머 초파리의 장내 세균, 장–뇌 축 연구의 다수가 여기 해당한다. 진정으로 ‘곰팡이’ 연구인 것들 — 베처의 효모 유인, 크리스티안스의 ATF1, 히메네스-파디야의 살아 있는 효모, 싱의 Beauveria, 엘리아의 Entomophthora, 벤미문의 BBB 통과 — 을 세균 연구와 뒤섞어 읽으면 마이코바이옴 분야의 실제 성숙도를 과대평가하게 된다.
초파리가 답할 수 있는 것과 없는 것
정직한 결론을 위해 초파리 모델의 한계를 분명히 해두자. 초파리에게는 적응면역(항체·T세포)이 없다. 순환계가 개방형이라 포유류의 혈관계와 다르고, 뇌의 신경교 구성도 달라 예컨대 희소돌기아교세포(oligodendrocyte)가 없다. 무엇보다 인간 질병 유전자 중 상당수 — 초기 유전체 비교(포르티니 등 2000)에서는 약 38%가 — 는 초파리에 뚜렷한 대응물이 없거나 크게 다르다. 초파리 자신의 마이코바이옴조차 아직 충분히 규명되지 않았고, 실험실 초파리와 야생 초파리의 미생물 조성은 크게 다르다. 실험실 초파리에서 얻은 결론을 곧바로 자연의 초파리, 하물며 인간에게 확대하는 것은 위험하다.
그렇다면 초파리는 어떤 질문에 유일무이하게 강한가? 나는 세 가지를 꼽겠다. 첫째, 단일 곰팡이 종의 인과적 효과 — 그노토바이오틱 초파리에 특정 효모 한 종만 넣어 행동·대사·면역의 변화를 인과적으로 검증하는 일. 둘째, 숙주 유전자 스크리닝 — 곰팡이 반응에 관여하는 숙주 유전자를 전장 규모로 뒤지는 일. 셋째, 기전의 세포·회로 수준 해부 — 곰팡이가 뇌와 행동에 개입하는 경로를 개별 뉴런과 신호분자 단위까지 분해하는 일. 반대로 초파리가 답할 수 없는 것은 명확하다. 인간 장내 곰팡이 군집의 생태적 조성과 역학, 적응면역이 관여하는 만성 질환의 전모, 그리고 인간 특이적 유전자에 의존하는 병태생리는 초파리 바깥에서 검증되어야 한다.
에필로그 — 거울로서의 초파리
다시 여름의 과일 그릇으로 돌아온다. 그 위를 맴돌던 작은 파리는, 알고 보면 곰팡이를 좇는 사냥꾼이자 곰팡이를 실어 나르는 운송자이며, 곰팡이에게 뇌를 내어줄 수도 있는 숙주다. 초파리와 곰팡이의 관계는 우리 몸속 곰팡이 동거인을 비추는 거울과 같다. 완벽하게 같은 모습을 비추지는 않지만, 다른 어떤 도구로도 볼 수 없는 각도를 보여주는 거울이다.
마이코바이옴은 미생물학의 마지막 큰 미개척지 중 하나다. 그 지도를 그리는 데 초파리는 분명 값진 도구다. 다만 그 가치는 초파리를 ‘작은 인간’으로 착각할 때가 아니라, 초파리만이 답할 수 있는 인과적·유전적·기전적 질문에 정확히 겨눌 때 빛난다. 좋은 과학은 도구의 힘을 최대한 쓰되 그 한계를 정직하게 아는 데서 나온다. 우리의 곰팡이 동거인에 대해 우리는 이제 막 질문을 제대로 던지기 시작했을 뿐이다.
주요 참고문헌
- Ebrahim RA, Raghu SV, Das SP (2026) The underexplored mycobiome: insights from Drosophila into human health and disease. Antonie van Leeuwenhoek 119:202.
- Becher PG, Flick G, Rozpędowska E, et al. (2012) Yeast, not fruit volatiles mediate Drosophila melanogaster attraction, oviposition and development. Functional Ecology 26:822–828.
- Christiaens JF, Franco LM, Cools TL, et al. (2014) The fungal aroma gene ATF1 promotes dispersal of yeast cells through insect vectors. Cell Reports 9:425–432.
- Hoang D, Kopp A, Chandler JA (2015) Interactions between Drosophila and its natural yeast symbionts—Is Saccharomyces cerevisiae a good model for studying the fly–yeast relationship? PeerJ 3:e1116.
- Jiménez-Padilla Y, Adewusi B, Lachance M-A, Sinclair BJ (2024) Live yeasts accelerate Drosophila melanogaster larval development. Journal of Experimental Biology 227:jeb247932.
- Ribeiro C, Dickson BJ (2010) Sex peptide receptor and neuronal TOR/S6K signaling modulate nutrient balancing in Drosophila. Current Biology 20:1000–1005.
- Ludington WB, Ja WW (2020) Drosophila as a model for the gut microbiome. PLoS Pathogens 16(4):e1008398.
- Lemaitre B, Nicolas E, Michaut L, Reichhart JM, Hoffmann JA (1996) The dorsoventral regulatory gene cassette spätzle/Toll/cactus controls the potent antifungal response in Drosophila adults. Cell 86:973–983.
- Elya C, Lavrentovich D, Lee E, et al. (2023) Neural mechanisms of parasite-induced summiting behavior in ‘zombie’ Drosophila. eLife 12:e85410.
- Singh DND, Roberts ARE, Wang X, et al. (2025) Toll-1-dependent immune evasion induced by fungal infection leads to cell loss in the Drosophila brain. PLoS Biology 23(2):e3003020.
- Benmimoun B, Papastefanaki F, Périchon B, et al. (2020) An original infection model identifies host lipoprotein import as a route for blood–brain barrier crossing. Nature Communications 11:6106.
- Iliev ID, Funari VA, Taylor KD, et al. (2012) Interactions between commensal fungi and the C-type lectin receptor Dectin-1 influence colitis. Science 336:1314–1317.
- Limon JJ, Tang J, Li D, et al. (2019) Malassezia is associated with Crohn’s disease and exacerbates colitis in mouse models. Cell Host & Microbe 25:377–388.
- Leonardi I, Gao IH, Lin W-Y, et al. (2022) Mucosal fungi promote gut barrier function and social behavior via Type 17 immunity. Cell 185:831–846.
- Nash AK, Auchtung TA, Wong MC, et al. (2017) The gut mycobiome of the Human Microbiome Project healthy cohort. Microbiome 5:153.
- Auchtung TA, Fofanova TY, Stewart CJ, et al. (2018) Investigating colonization of the healthy adult gastrointestinal tract by fungi. mSphere 3:e00092-18.
- Wu Y, Du S, Johnson JL, et al. (2019) Microglia and amyloid precursor protein coordinate control of transient Candida cerebritis with memory deficits. Nature Communications 10:58.
- Aykut B, Pushalkar S, Chen R, et al. (2019) The fungal mycobiome promotes pancreatic oncogenesis via activation of MBL. Nature 574:264–267.
- Fletcher AA, Kelly MS, Eckhoff AM, Allen PJ (2023) Revisiting the intrinsic mycobiome in pancreatic cancer. Nature 620:E1–E6.
- Bozkurt B, Terlemez G, Sezgin E (2023) Basidiomycota species in Drosophila gut are associated with host fat metabolism. Scientific Reports 13:13807.
- Medeiros MJ, Seo L, Macias A, Price DK, Yew JY (2024) Bacterial and fungal components of the microbiome have distinct roles in Hawaiian Drosophila reproduction. ISME Communications 4:ycae134.
- Fortini ME, Skupski MP, Boguski MS, Hariharan IK (2000) A survey of human disease gene counterparts in the Drosophila genome. Journal of Cell Biology 150:F23–F30.
- Ebrahim, R.A., Raghu, S.V. & Das, S.P. The underexplored mycobiome: insights from Drosophila into human health and disease. Antonie van Leeuwenhoek 119, 202 (2026). https://doi.org/10.1007/s10482-026-02412-9 ↩︎
You must be logged in to post a comment.