
파리를 키우는 사람으로서 나는 꿀벌 논문을 읽을 때 늘 약간의 부러움과 약간의 의심을 동시에 느낀다. 부러움은 꿀벌 장이 여덟아홉 종의 세균으로 이루어진, 거의 실험실이 설계한 것처럼 단순하고 재현 가능한 군집이라는 사실에서 온다. 우리 초파리의 장 미생물은 먹이와 사육 환경에 따라 손가락 사이로 빠져나가는 모래처럼 변덕스러운데, 꿀벌은 Snodgrassella, Gilliamella, 두 종류의 Lactobacillus, Bifidobacterium 정도로 이야기가 시작된다. gnotobiotic 실험, 즉 무균 동물에 정해진 균을 하나씩 심어 원인을 추적하는 실험을 하기에 이보다 좋은 동물이 흔치 않다. 의심은 다른 데서 온다. 바로 그 단순함이, 잘못 쓰면 “무엇이든 말할 수 있을 것 같은” 착시를 준다는 점이다.
이번에 읽은 논문—Liu·Chen·Wu의 “핵심 장내 공생균이 숙주 면역을 상향조절하여 꿀벌의 flumethrin 저항성을 높인다“—은 그 부러움과 의심을 정확히 반씩 자극했다. 먼저 공정하게, 이 논문이 진짜로 보여준 것을 말하고 싶다. flumethrin이라는 살비제를 만성적으로 먹인 사육 벌은 중장 상피가 무너지고 주위영양막이 흐트러지며, 0.1 mg/L 이상에서 더 많이 죽는다. 이건 사실이고, 조직 사진은 설득력이 있다. 그리고 무균벌에 Gilliamella나 Snodgrassella 같은 공생균 하나를 심어주면, 같은 독을 주어도 무균벌보다 더 잘 산다. 최고 농도에서 무균벌은 66%가 살고 Gilliamella를 심은 벌은 94%가 살았다. 이 대비는 무시할 수 없다. “장내 공생균이 벌을 화학적 스트레스로부터 얼마간 지켜준다”는 큰 그림은, 나는 믿는다.
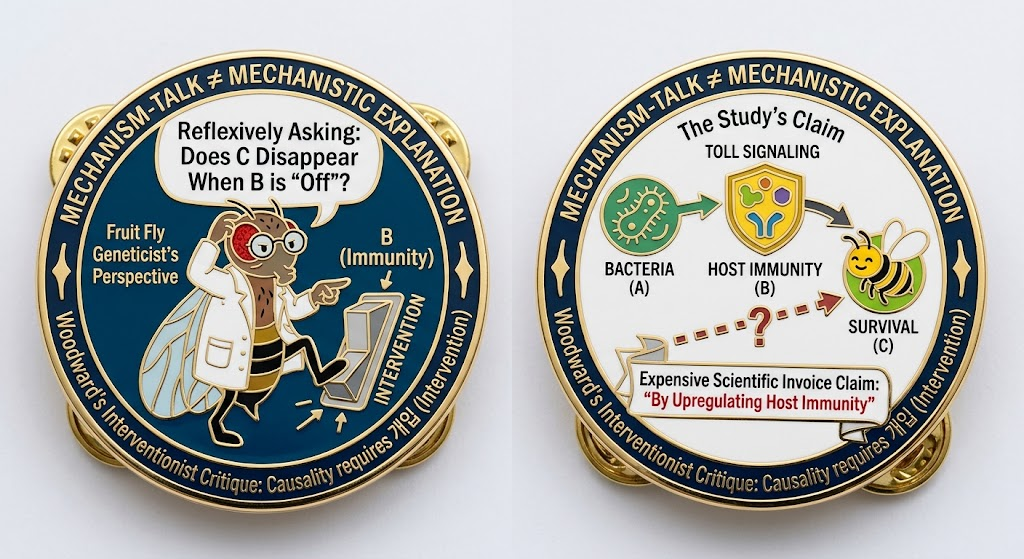
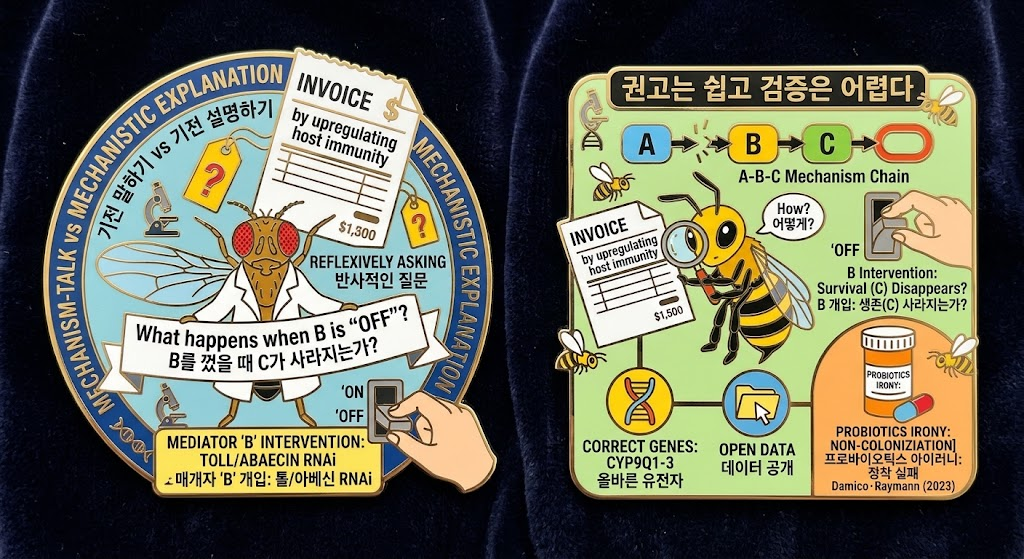
문제는 제목의 그 한 구절, “면역 상향조절에 의해(by upregulating host immunity)”다. 여기서 파리 유전학자의 오래된 버릇이 발동한다. 우리는 “A가 B를 통해 C를 한다”는 문장을 보면 반사적으로 묻는다. B를 껐을 때 C가 사라지는가? 이 논문에서 A는 세균이고, C는 생존이며, B는 면역—구체적으로 Toll과 두 개의 항균 펩타이드(Defensin-1, Abaecin), 그리고 항산화 효소인 SOD·CAT다. 저자들은 A를 정착시켰고(세균을 심었고), C를 측정했으며(생존을 셌고), B가 함께 올라간 것을 보았다(qPCR로 유전자 발현이 높아진 것을 관찰했다). 하지만 그들은 B에는 한 번도 손대지 않았다. Toll을 침묵시키거나, Abaecin을 결실시키거나, 항균 펩타이드를 못 만드는 세균 변이체를 쓰거나 하지 않았다. 다시 말해, 상향조절된 면역이 정말로 생존을 매개했는지—매개(mediation)—는 검증되지 않았다.
철학자들이 즐겨 쓰는 구분을 빌리자면, 이건 ‘기전을 말하는 것(mechanism-talk)’과 ‘기전을 설명하는 것(mechanistic explanation)’의 차이다. Machamer·Darden·Craver가 말한 기전이란 시작 조건에서 종료 조건까지를 잇는, 실체(entities)와 활동(activities)의 조직된 연쇄다. “세균이 면역을 올린다, 그래서 벌이 산다”는 문장은 기전처럼 들리지만, 실은 두 개의 상관(세균-생존, 세균-유전자발현)을 접착제 없이 나란히 놓은 것에 가깝다. Woodward의 개입주의로 바꿔 말하면 더 날카로워진다. 인과 주장은 “원인 변수에 개입했을 때 결과 변수가 바뀐다”로 정의되는데, 이 논문은 원인 후보인 미생물에는 훌륭하게 개입했으면서 제안된 매개자인 면역에는 개입하지 않았다. 그러니 “면역에 의해”라는 전치사구는, 데이터가 지불한 것보다 비싼 청구서다.
게다가 대안 설명이 눈앞에 있다. 놀랍게도 Gilliamella를 심은 벌들은 flumethrin이 든 시럽을 더 많이 먹고도 더 잘 살았다. 면역이 답이라면, 더 많은 독을 먹고도 이겼다는 뜻이니 면역이 어지간히 세야 한다. 그러나 더 단순한 설명이 있다. Moran 그룹의 Zheng이 2017년에 보였듯, 장내 미생물은 꿀벌의 체중 증가와 인슐린·vitellogenin 신호를 끌어올린다. 더 잘 먹고, 더 튼튼하고, 에너지 예비가 큰 벌이 독을 더 잘 버티는 것은 면역과 무관하게 가능하다. 장벽이 튼튼해 흡수가 줄었을 수도 있고, 세균이 flumethrin을 붙들어 격리했을 수도 있다—Reid 그룹이 초파리에서 Lactobacillus rhamnosus GG가 유기인계 농약을 대사하지 않고 그냥 붙잡아 격리함으로써 독성을 낮춘다고 보인 것처럼. 이 대안들을 배제하려면 벌 몸속 flumethrin 농도를 재기만 하면 됐는데, 그 측정이 없다.
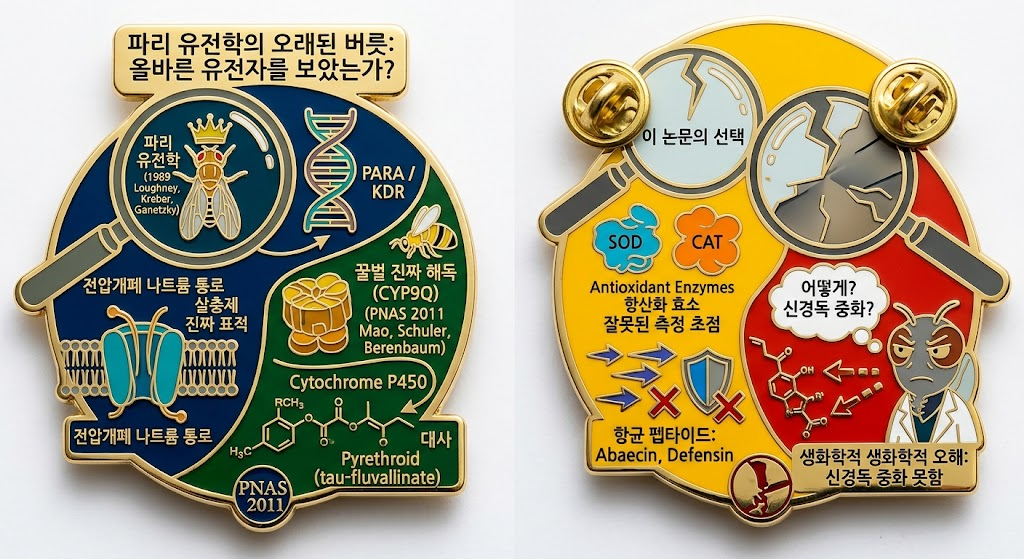
두 번째 버릇은 “올바른 유전자를 봤는가”다. 피레스로이드가 무엇을 공격하는지 우리는 안다. 전압개폐 나트륨 통로다. 그리고 그 통로의 분자적 정체를 처음 밝힌 것이 바로 파리 유전학이다. 1989년 Loughney·Kreber·Ganetzky가 Drosophila의 para(paralytic) 유전자를 클로닝했고, 살충제 저항성(kdr) 돌연변이가 이 유전자좌에 앉는다는 것이 뒤따랐다. 피레스로이드에 맞서는 꿀벌의 해독 역시 잘 알려져 있다. Mao·Schuler·Berenbaum이 2011년 PNAS에서 보인 CYP9Q 계열 P450가 tau-fluvalinate 같은 살비제를 대사한다. 그런데 이 논문은 CYP를 스스로 언급하면서도—심지어 화분을 안 준 이유로 “화분이 CYP 활성을 조절하니까”라고 대면서도—정작 CYP9Q1–3를 재지 않았다. 대신 SOD와 CAT을 쟀는데, 이건 항산화 효소이지 나트륨 통로 독에 대한 해독의 정공법이 아니다. 더 아쉬운 건, 같은 교신저자 그룹의 2020년 논문(Wu et al., Microbial Biotechnology)이 “장내 미생물이 소화관에서 숙주 P450 발현을 올린다”고 이미 보였다는 점이다. 측정해야 할 축이 자기 문헌 안에 있었다. abaecin이나 defensin 같은 항균 펩타이드가 어떻게 나트륨 통로 독을 막는다는 것인지, 나로서는 생화학적 그림을 그리기 어렵다. 항균 펩타이드는 세균과 곰팡이를 뚫는 무기이지, 신경독을 중화하는 효소가 아니다.
세 번째 버릇은 숫자를 소리 내어 읽어보는 것이다. 여기서 나는 조심스럽다. 나는 저자들의 선의를 의심하지 않으며, 부정행위를 주장할 생각은 전혀 없다. 다만 보고된 통계가 명시된 검정으로 재현되지 않는다는 사실은 중립적으로 기록해 둘 필요가 있다. n=3 대 n=3의 Mann–Whitney 검정이 낼 수 있는 가장 작은 양측 p값은 0.10이다. 순열이 스무 가지뿐이라 그보다 작아질 수가 없다. 그런데 그림에는 n=3 비교에서 p<0.0001이 별 네 개로 여럿 찍혀 있고, Shannon 다양성은 p=0.0008로 적혀 있다. 여섯 군에 군당 넷씩인 Kruskal–Wallis+Dunn 분석에서도, 같은 대조군에 대해 p<0.0001에 도달할 수 있는 군은 산술적으로 하나뿐인데 여러 군이 그 값을 받았다. 이건 누구의 인격에 대한 판단이 아니라, 스프레드시트를 다시 열어보면 될 일이다. 논문에는 이런 종류의 어긋남이 더 있다. 초록과 결론은 “노출이 다양성을 감소시켰다”고 하지만 데이터에서 0.1 mg/L의 Shannon은 오히려 올라갔다. “가장 강한 유도 균주”가 어느 절에서는 B. mellis·Gilliamella, 다른 절에서는 Lactobacillus·Gilliamella·Bartonella로 바뀐다. flumethrin에 대한 방어 결론이 정작 flumethrin을 주지 않은 실험에서 도출되기도 한다. 상대 존재비 0.05%도 안 되는 세균의 증가를 “병원체 대증식”이라 부른다. 하나하나는 사소할 수 있으나, 모이면 원고가 빠르게 조립되었다는 인상을 준다.
그래서 나는 이 논문을 하나의 ‘장르’로 읽게 된다. 살충제를 먹인다 → 시퀀싱을 한다 → 무균벌에 균을 하나씩 심는다 → 항균 펩타이드 몇 개를 qPCR한다 → 프로바이오틱을 권한다. 같은 그룹이 fluvalinate로, ethiprole로, 항생제로 이미 여러 번 돌린 틀이고, 다른 그룹은 deltamethrin으로 거의 똑같이 돌렸다(Dong et al. 2022는 제목까지 닮았다). 나는 여기서 국적의 문제를 말하려는 게 결코 아니다—강한 기전 연구가 중국 랩에서 나온다는 증거는 차고 넘친다. 같은 나라의 Hao Zheng 그룹은 2022년 Nature Communications에서 장내 미생물이 tryptophan을 indole 유도체로 바꿔 숙주의 AhR 수용체를 켜서 학습과 기억을 조절한다는 것을, 균주 수준에서, 대사경로까지 짚어 보였다. 문제는 국적이 아니라 유인(incentive)과 장르다. SCI·임팩트팩터 중심의 평가, 빠른 저널 회전, “완결된 이야기”를 요구하는 심사 문화가 template 논문을 양산한다. 접수에서 온라인까지 석 달이 안 걸린 이 논문의 속도가, 그 압력의 지문처럼 보인다.
대비를 위해 Moran 계보를 떠올려 본다. 그들도 처음엔 상관에서 출발했다. 하지만 Kwong·Mancenido·Moran(2017)은 항균 펩타이드가 올라간 것을 전사로만 보지 않고 프로테오믹스로 펩타이드 산물까지 장과 혈림프에서 검출했다. Horak·Leonard·Moran(2020)은 살아있는 Snodgrassella와 열처리한 Snodgrassella를 나란히 비교해서, 죽은 균으로는 안 되고 살아있는 균만이 면역을 켜고 병원체를 제거한다는 결정적 대조를 세웠다. 이 열처리 대조군 하나가, 내가 대상 논문에서 가장 그리워한 것이다. glyphosate 연구(Motta et al. 2018)에서는 세균의 EPSPS를 민감형(class I)과 저항형(class II)으로 나누는 분자 기전을 제시하고, 벌에 색점을 찍어 벌통 복귀를 추적하고, Serratia 챌린지로 건강 결과를 이었다. amygdalin이라는 식물독을 벌과 미생물이 어떻게 나눠 처리하는지는 대사체로 규명했다(Motta et al. 2022, eLife). 그리고 Leonard et al.(2020, Science)은 아예 Snodgrassella를 유전자 조작해 dsRNA를 뿜게 만들어 숙주 면역과 RNAi를 켜서 바이러스와 응애를 억제했다. 이것이 “미생물 → 숙주 유전자 → 표현형”을 개입으로 잇는다는 것의 의미다. 파리 쪽에서 Lemaitre 그룹의 Hanson et al.(2019)이 CRISPR로 열네 개 항균 펩타이드 유전자를 결실시켜 “이 펩타이드가 정말 필요한가”를 표현형으로 증명한 것과 같은 정신이다.
그렇다면 설득력 있는 실험은 어떻게 생겼을까. 어렵지 않게 그려진다. 꿀벌은 이제 조작 공생균 매개 RNAi가 가능하니, Gilliamella를 심어 방어가 생긴 벌에서 Toll이나 Abaecin을 RNAi로 꺼보라. 방어가 사라지면 면역 매개가 지지되고, 그대로면 다른 설명을 찾아야 한다. 항균 펩타이드를 못 만드는 세균 변이체와 열처리 세균을 대조로 두라. 벌 몸속 flumethrin 농도를 재서 “덜 죽는 벌이 실은 독을 덜 품고 있는 것”인지 배제하라. 그리고 피레스로이드라면 SOD·CAT이 아니라 CYP9Q1–3를 재라. 통상 군집 대조군을 두고, 균주의 유전체를 보고하고, 메타지놈을 공공 저장소에 올려라. 이 목록은 트집이 아니라, 이 분야가 이미 스스로에게 요구해 온 표준이다.
마지막으로 나를 가장 오래 붙든 것은, 이 이야기 전체에 감도는 기묘한 아이러니다. flumethrin은 밖에서 날아든 오염물질이 아니다. 양봉가가 응애를 잡으려고 벌통 안에 스스로 넣는 살비제다. 화학적 해법이 벌의 마이크로바이옴을 망가뜨리고, 그 망가진 마이크로바이옴을 다시 프로바이오틱이라는 또 다른 화학적·생물학적 해법으로 메우자고 이 논문은 권한다. 기술적 처방이 만든 문제를 또 다른 기술적 처방으로 덮는 순환. 그런데 그 프로바이오틱이 정말 듣는지에 대해서는, 같은 분야의 Damico·Raymann(2023)이 미국에서 가장 많이 팔리는 상용 꿀벌 프로바이오틱의 균이 벌 장에서 아예 정착하지 못한다는 필드 데이터를 이미 내놓았다. 권고는 쉽고 검증은 어렵다.
나는 Morgan의 파리방 전통을, 균주와 데이터와 방법을 아낌없이 나누던 그 공유지의 윤리를 좋아한다. 그 눈으로 보면 이 논문에서 가장 아쉬운 것은 통계의 별표가 아니라, 메타지놈 원자료가 “요청 시 제공”이라는 한 줄과 그 위에 얹힌 AI 학습 금지 조항이다. 재현은 데이터가 공개된 곳에서만 자란다. 그러니 이 글을 비난으로 읽지 않았으면 한다. 이건 같은 실험대 앞에 선 사람의 제안에 가깝다. 당신들은 진짜 현상을 붙들었다—공생균이 벌을 얼마간 지켜준다는 것. 다만 제목이 데이터를 앞질렀을 뿐이다. 매개자에 개입하고, 올바른 유전자를 재고, 데이터를 열어라. 그러면 “면역에 의해”라는 그 전치사구는, 청구서가 아니라 영수증이 될 것이다.
참고문헌(주요 링크)
- Liu J, Chen J, Wu X (2026) Core gut symbionts enhance honeybee resilience to flumethrin stress by upregulating host immunity. Environ Pollut 410:129215. doi:10.1016/j.envpol.2026.129215
- Liu J et al. (2024) Flumethrin exposure perturbs gut microbiota structure and intestinal metabolism in honeybees. J Hazard Mater 480:135886. https://pubmed.ncbi.nlm.nih.gov/39298952/
- Qi S et al. (2022) Acaricide flumethrin-induced sublethal risks associated with Gilliamella apicola. Chemosphere 307:136030. https://www.sciencedirect.com/science/article/abs/pii/S0045653522025231
- Dong Z-X et al. (2022) Honeybee resistance to deltamethrin by modulating gut microbiota and improving immunity. Environ Pollut 314:120340. https://www.sciencedirect.com/science/article/abs/pii/S0269749122015548
- El Agrebi N et al. (2019) Belgian case study on flumethrin residues in beeswax. Sci Total Environ 687:712. https://orbi.uliege.be/bitstream/2268/238038/1/1-s2.0-S0048969719325537-main.pdf
- Kwong WK, Moran NA (2016) Gut microbial communities of social bees. Nat Rev Microbiol 14:374. https://www.nature.com/articles/nrmicro.2016.43
- Motta EVS, Moran NA (2024) The honeybee microbiota and its impact on health and disease. Nat Rev Microbiol 22:122. https://www.nature.com/articles/s41579-023-00990-3
- Kwong WK, Mancenido AL, Moran NA (2017) Immune system stimulation by the native gut microbiota of honey bees. R Soc Open Sci 4:170003. https://royalsocietypublishing.org/doi/10.1098/rsos.170003
- Horak RD, Leonard SP, Moran NA (2020) Symbionts shape host innate immunity in honeybees. Proc R Soc B 287:20201184. https://royalsocietypublishing.org/doi/10.1098/rspb.2020.1184
- Steele MI et al. (2021) The gut microbiota protects bees from invasion by a bacterial pathogen. Microbiol Spectr 9:e00394-21.
- Motta EVS, Raymann K, Moran NA (2018) Glyphosate perturbs the gut microbiota of honey bees. PNAS 115:10305. https://www.pnas.org/doi/10.1073/pnas.1803880115
- Motta EVS, Moran NA (2020) Impact of glyphosate on the honey bee gut microbiota. mSystems 5:e00268-20.
- Motta EVS, Powell JE, Moran NA (2022) Glyphosate induces immune dysregulation in honey bees. Animal Microbiome 4:16.
- Motta EVS et al. (2022) Host-microbiome metabolism of a plant toxin in bees. eLife 11:e82595. https://elifesciences.org/articles/82595
- Raymann K, Shaffer Z, Moran NA (2017) Antibiotic exposure perturbs the gut microbiota and elevates mortality in honeybees. PLoS Biol 15:e2001861. https://journals.plos.org/plosbiology/article?id=10.1371/journal.pbio.2001861
- Zheng H et al. (2017) Honeybee gut microbiota promotes host weight gain. PNAS 114:4775. https://www.pnas.org/doi/10.1073/pnas.1701819114
- Zheng H et al. (2016) Metabolism of toxic sugars by strains of Gilliamella apicola. mBio 7:e01326-16. https://journals.asm.org/doi/10.1128/mbio.01326-16
- Zheng H et al. (2018) Honey bees as models for gut microbiota research. Lab Animal 47:317.
- Powell JE et al. (2016) Genome-wide screen identifies host colonization determinants in Snodgrassella alvi. PNAS 113:13887. https://www.pnas.org/content/113/48/13887
- Leonard SP et al. (2018) Genetic engineering of bee gut microbiome bacteria (BTK). ACS Synth Biol 7:1279. https://pubs.acs.org/doi/abs/10.1021/acssynbio.7b00399
- Leonard SP et al. (2020) Engineered symbionts activate honey bee immunity and limit pathogens. Science 367:573. https://www.science.org/doi/10.1126/science.aax9039
- Huang Q, Lariviere PJ, Powell JE, Moran NA (2023) Engineered gut symbiont inhibits microsporidian parasite in honey bees. PNAS 120:e2220922120. https://www.pnas.org/doi/10.1073/pnas.2220922120
- Almasri H et al. (2022) Mild chronic exposure to pesticides alters physiological markers without perturbing the core gut microbiota. Sci Rep 12:4281. https://www.nature.com/articles/s41598-022-08009-2
- Zhang Z et al. (2022) Honeybee gut microbiota modulates learning and memory via tryptophan metabolism. Nat Commun 13:2037. https://www.nature.com/articles/s41467-022-29760-0
- Wu Y et al. (2020) Honey bee gut microbiota promotes host detoxification via P450 gene regulation. Microb Biotechnol 13:1201. https://enviromicro-journals.onlinelibrary.wiley.com/doi/full/10.1111/1751-7915.13579
- Kakumanu ML et al. (2016) Honey bee gut microbiome is altered by in-hive pesticide exposures. Front Microbiol 7:1255. https://www.frontiersin.org/articles/10.3389/fmicb.2016.01255/full
- Mao W, Schuler MA, Berenbaum MR (2011) CYP9Q-mediated detoxification of acaricides in the honey bee. PNAS 108:12657. https://www.pnas.org/doi/full/10.1073/pnas.1109535108
- Trinder M et al. (2016) Probiotic Lactobacillus rhamnosus reduces organophosphate absorption and toxicity in Drosophila. AEM 82:6204. https://journals.asm.org/doi/10.1128/aem.01510-16
- Daisley BA et al. (2018) Microbiota-mediated modulation of organophosphate toxicity by lactobacilli in Drosophila. AEM 84:e02820-17. https://journals.asm.org/doi/full/10.1128/aem.02820-17
- Damico ME, Beasley B, Greenstein D, Raymann K (2023) Testing a commercial probiotic on restoring honey bee gut microbiota: a field study. Probiotics Antimicrob Proteins. https://link.springer.com/article/10.1007/s12602-023-10203-1
- Tang Q et al. (2023) Gut microbiome helps honeybee resist toxic nectar (Bidens pilosa). Environ Microbiol 25:2020. https://pubmed.ncbi.nlm.nih.gov/37291689/
- Barascou L et al. (2021) Pollen nutrition fosters honeybee tolerance to pesticides. R Soc Open Sci 8:210818. https://royalsocietypublishing.org/doi/10.1098/rsos.210818
- Klein A-M et al. (2007) Importance of pollinators in changing landscapes for world crops. Proc R Soc B 274:303. https://royalsocietypublishing.org/doi/10.1098/rspb.2006.3721
- Hung KLJ et al. (2018) The worldwide importance of honey bees as pollinators in natural habitats. Proc R Soc B 285:20172140. https://royalsocietypublishing.org/rspb/article/285/1870/20172140
- Hanson MA et al. (2019) Synergy and remarkable specificity of antimicrobial peptides in vivo. eLife 8:e44341. https://elifesciences.org/articles/44341
- Ha E-M et al. (2005) A direct role for dual oxidase in Drosophila gut immunity. Science 310:847. https://www.science.org/doi/10.1126/science.1117311
- Lee K-A et al. (2013) Bacterial-derived uracil modulates mucosal immunity in Drosophila. Cell 153:797. https://pubmed.ncbi.nlm.nih.gov/23663779/
- Jones RM et al. (2013) Symbiotic lactobacilli stimulate gut epithelial proliferation via Nox-mediated ROS. EMBO J 32:3017. https://pmc.ncbi.nlm.nih.gov/articles/PMC3844951
- Loughney K, Kreber R, Ganetzky B (1989) Molecular analysis of the para locus, a sodium channel gene in Drosophila. Cell 58:1143. https://www.sciencedirect.com/science/article/abs/pii/0092867489905126
꿀벌 장내 공생균과 flumethrin 저항성 논문 비평 · Moran 계보와의 비교 · 그리고 한 편의 블로그 에세이
TL;DR
- Liu·Chen·Wu (2026, Environmental Pollution 410:129215)는 “핵심 장내 공생균이 숙주 면역을 상향조절하여 꿀벌의 flumethrin 저항성을 높인다”고 주장하지만, 실제로 확립된 것은 두 가지—(i) flumethrin이 사육 꿀벌의 장 조직과 생존을 손상시킨다, (ii) 단일 공생균을 정착시킨 무균벌이 flumethrin에 더 잘 살아남는다—뿐이며, 제목의 인과 기전(“면역 상향조절에 의해”)은 상관적 qPCR 5종 유전자에만 의존하고 매개(mediation)가 검증되지 않았다.
- 통계·보고의 내적 모순이 다수 있다: 저자들이 명시한 검정(n=3 vs n=3 Mann–Whitney, 그리고 6군×n=4 Kruskal–Wallis+Dunn)은 보고된 다수의 P<0.0001을 산출할 수 없고, 다양성 방향(본문 vs 결론), “가장 강한 유도 균주”의 정체, flumethrin 실험이 아닌 무처리 실험에서 flumethrin 방어 결론을 끌어온 점 등이 서로 어긋난다.
- Nancy Moran(UT Austin) 계보 및 Engel·Zheng 등 인접 그룹은 같은 “미생물→면역→내성” 가설을 상관에서 멈추지 않고 세균 유전학(Tn-seq, 조작 공생균), 숙주 유전학, 대사체·필드 검증, 균주 수준 해상도로 밀어붙였다—이 논문이 ‘기전을 말하기’와 ‘기전을 설명하기’ 사이의 간극을 잘 보여주는 사례다.
Part 1 — 논문 요약과 비판적 평가
1.1 배경과 위치
대상 논문은 Liu J, Chen J, Wu X, “Core gut symbionts enhance honeybee (Apis mellifera) resilience to flumethrin stress by upregulating host immunity,” Environmental Pollution 410 (2026) 129215 (doi:10.1016/j.envpol.2026.129215)이다. 교신저자는 江西农业大学(난창) 蜜蜂研究所의 Xiaobo Wu이며, NSFC 32372942의 지원을 받았다. 접수 2026-07-02, 수정 2026-09-06, 게재확정 2026-09-21, 온라인 2026-09-24로 심사 주기가 매우 짧다. 데이터는 “요청 시 제공”으로만 되어 있고 메타지놈 accession은 제시되지 않았다. 저작권 표시에는 Elsevier의 텍스트·데이터 마이닝 및 AI 학습 유보 조항이 포함되어 있다.
flumethrin은 피레스로이드계 살비제로, 사실상 양봉가가 Varroa destructor(응애) 방제를 위해 벌통 안에 스트립(예: Bayvarol) 형태로 직접 투여하는 물질이다. 즉 이 노출은 일반적 의미의 “환경오염”이라기보다 양봉 관행에서 비롯된 in-hive 잔류에 가깝다. 논문은 flumethrin의 용도를 “체표 기생충 감염”에 대한 것이라고 모호하게 기술한다.
1.2 설계와 핵심 결과
실험 1(만성 경구 노출). 밀봉 봉판에서 우화시킨 일벌에게 0–7일 동안 자당+간호벌 20마리 후장 균질액+멸균 화분을 먹여 통상적 마이크로바이오타를 확립한 뒤, 7–21일에 flumethrin을 0, 0.01, 0.1, 1 mg/L로 경구 투여했다(군당 180마리, 6케이지×30). 생존(log-rank), 섭식량, 체중, 장 무게, 중장 H&E 조직, 그리고 군당 n=3의 shotgun 메타지놈(Bowtie2 숙주 제거, MEGAHIT, MMseqs2, KEGG)을 분석했다. 결과: 생존은 0.1(P=0.038)·1 mg/L(P=0.0025)에서 감소했으나 0.01에서는 아니었고, 14일차 대조군 생존률 약 79% 대 최고농도군 약 62%였다. 섭식량은 통계적으로 유의하지 않았음(P=0.06, 0.40, 0.26)에도 본문은 용량 의존적으로 “감소”했다고 서술한다. 체중은 1 mg/L에서만 감소, 장 무게는 전 용량에서 감소했다. H&E에서는 상피 붕괴·장벽 얇아짐·주위영양막(peritrophic matrix) 교란이 관찰되었다. 알파 다양성은 0.01에서 감소하나 0.1에서 오히려 증가(Shannon P=0.0008), 1 mg/L에서는 유의하지 않았는데, 초록과 결론은 노출이 “다양성을 감소시켰다”고 진술한다. 상대 존재비에서 S. alvi는 0.01에서 증가·고농도에서 감소, G. apicola·F. perrara·B. apis·B. mellis는 감소, L. apis는 증가, 그리고 Klebsiella(약 0.027%→0.03–0.046%)와 Paenibacillus(약 0.013%→0.018–0.026%)가 증가했는데 논문은 이 둘이 모두 상대 존재비 0.05% 미만임에도 “잠재 병원체 대증식(bloom)”이라 부른다.
실험 2(무균벌 단일정착, 살충제 없음). 무균(GF)벌 480마리를 6군(GF, B. mellis, L. apis, B. apis, S. alvi, G. apicola)으로 나누고 OD600=1 세균 현탁 자당액을 먹였다. 화분은 “화분이 CYP 활성을 조절한다”는 이유로 전 기간 제공하지 않았다. 균주 정체·기원·유전체는 보고되지 않았고, 통상군(전체 군집 대조군)도 없다. SOD, CAT, Toll, Defensin-1, Abaecin의 전장(全腸) qPCR(RPS18 기준, 2^-ΔΔCt, n=4)을 측정했다. 결과: GF 생존 약 93% 대 정착군 약 95–98%, CAT과 Abaecin은 5개 균주 모두에서 상향조절. 그런데 이 무(無)flumethrin 실험에서 “핵심 장내 미생물이 flumethrin 유발 장내 미생물 항상성 교란으로부터 보호한다”는 결론이 도출된다.
실험 3(정착벌 + flumethrin 1 mg/L, 7일). 생존은 GF+FL 65.8%, B. mellis 81.7%, S. alvi 86.1%, L. apis 90.2%, B. apis 88.1%, G. apicola 94.1%(논의부는 94.0%로 표기). G. apicola군이 섭식·체중·장 무게 모두 최고였다. qPCR(GF+FL 대비 n=4): L. apis·G. apicola·B. apis가 SOD·CAT·Defensin-1·Abaecin을 상향조절, Toll은 G. apicola+FL에서 감소. 논의는 G. apicola가 Toll을 통해 glycerophospholipid 대사를 강화한다고 추정하며, 결론은 프로바이오틱 제형을 권고한다.
1.3 신뢰할 수 있는 것
데이터가 실제로 뒷받침하는 결론은 절제되어 있다. 첫째, flumethrin 만성 노출은 사육 일벌의 장 조직(상피·주위영양막)을 손상시키고 0.1 mg/L 이상에서 생존을 낮춘다. 둘째, 단일 공생균(특히 G. apicola, S. alvi)을 정착시킨 무균벌은 flumethrin 존재 하에서 무균벌보다 더 잘 살아남는다. 이 두 관찰은 방향성 있게 재현 가능하고, 선행 연구(Qi 2022; Dong 2022; Wu 2020)와도 정합적이다. “장내 공생균이 꿀벌의 화학적 스트레스 완충에 기여한다”는 넓은 명제 자체는 이 분야의 축적된 증거와 부합한다.
1.4 주장이 증거를 앞서는 지점
(a) 기전(매개)이 검증되지 않았다. 개입(intervention)의 대상은 세균이지 면역 유전자가 아니다. “면역 상향조절”은 5종 유전자의 상관적 qPCR에만 근거한다. 결정적으로 빠진 것: Toll/AMP의 RNAi(꿀벌에서는 Leonard 2020식 조작 공생균 매개 RNAi가 가능하다), 세균 변이체, 열처리(heat-killed) 세균 대조군, 세균이 flumethrin을 분해·격리하는지 검사, 그리고 체내 flumethrin 실측. 오히려 정착벌(특히 G. apicola)은 flumethrin이 든 시럽을 더 많이 먹고도 더 잘 살아남았는데, 이는 면역이 아니라 영양·에너지 강건성(cf. Zheng 2017, 체중 증가), 장벽 건전성, 흡수 감소, 미생물 대사 같은 대안 설명을 강하게 시사한다. 따라서 제목의 “면역 상향조절에 의해”는 이 대안들에 대해 확립되지 않았다.
(b) 해독 질문에 어긋나는 유전자 선택. SOD와 CAT은 항산화 효소이지 면역 유전자도, 표준적 해독 유전자도 아니다. 꿀벌의 피레스로이드(tau-fluvalinate/flumethrin 계열) 해독은 주로 CYP9Q1–3를 통해 이루어진다(Mao, Schuler & Berenbaum 2011, PNAS 108:12657). 이 논문은 CYP와 화분을 스스로 언급하면서도 정작 CYP9Q를 측정하지 않았다. 더욱이 같은 질문에 대한 선행연구 Wu et al. 2020(Microbial Biotechnology 13:1201)은 꿀벌 장내 미생물이 소화관에서 숙주 P450(해독) 유전자 발현을 촉진함을 이미 보였다—측정했어야 할 축이 무엇인지 문헌이 가리키고 있었던 셈이다.
(c) 통계와 명시된 방법의 불일치(중립적 기술). n=3 대 n=3의 양측 정확 Mann–Whitney가 낼 수 있는 최소 P는 2/20=0.10이다. 따라서 Fig 3의 n=3 비교에서 보고된 P<0.05…<0.0001과 Shannon P=0.0008은 명시된 검정(GraphPad Prism은 소표본에서 정확 P를 사용)으로는 산출될 수 없다. 6군×n=4(N=24)의 Kruskal–Wallis+Dunn에서도, 기준군 대비 Dunn 표준오차는 √(50×0.5)=5, 최대 평균순위차는 20이므로 최대 z=4(P≈6×10⁻⁵)이고 이 값에 도달할 수 있는 군은 단 하나, 다음 군은 기껏해야 z=3.2(P≈0.0014)다. 그런데 같은 GF 기준군 대비 다수의 P<0.0001이 보고된다(Fig 4E CAT의 B. mellis와 S. alvi; Fig 4E Abaecin의 G. apicola와 B. apis; Fig 5E CAT의 L. apis와 B. mellis). 즉 보고된 통계치는 명시된 방법과 모순된다. 아울러 방법 2.3은 Kruskal–Wallis, 2.8은 Mann–Whitney를 명시해 검정 기술이 서로 어긋나며, Fig 3C–J의 오차막대(예: S. alvi 약 22% ± 수십분의 일 %)는 n=3치고 이례적으로 좁다. 이는 misconduct의 주장이 아니라, 보고된 수치가 명시된 검정으로 재현되지 않는다는 관찰이며 저자 정정의 여지를 남긴다.
(d) 내적 불일치. 다양성 방향(결론 vs 데이터); “가장 강한 유도 균주”의 정체가 3.3절(B. mellis·G. apicola)과 3.4절·결론(L. apis·G. apicola·B. apis)에서 다름; 논의는 B. mellis·G. apicola가 Toll 포함 5개 유전자를 모두 상향조절했다고 하나 그림과 불일치; flumethrin 방어 결론을 무(無)flumethrin 실험에서 끌어옴; 섭식 감소를 유의하지 않음에도 주장; 94.1% vs 94.0%; 0.05% 미만의 “대증식”.
(e) 설계·대조군 문제. 통상 군집 대조군 부재; 균주 무명(정체·유전체 미보고); gnotobiotic 벌에 화분을 주지 않은 것은 특히 Firm-5 젖산균에 대해 교란요인(이들은 화분/식이 다당에 의존); 생존 분석의 케이지 유사반복(pseudoreplication); 단일 시점·소표본. 용량 적절성 문제도 크다.
(f) 인용 문제(확인된 것만). 여러 인용이 원출처와 대조했을 때 추적되지 않는다. 이는 고의성 주장이 아니라 “명시된 출처에서 해당 진술을 확인할 수 없다”는 관찰이다.
- Klein et al. 2007(Proc R Soc B 274:303)이 실제 출처인 “선도 작물의 동물 수분 의존” 수치가 Hung et al. 2018로 귀속되어 인용됨. Klein 2007의 원문은 “87 of the leading global food crops … while 28 crops do not”로, 흔히 인용되는 “115종 중 87종”의 근거다.
- Barascou et al. 2021(R Soc Open Sci 8:210818)이 “2020년 필드 연구”로 지칭되며 “sulfoxaflor 10 ppb에서 일벌 사망 3.2배, 여왕 산란력 47% 감소”라는 수치가 부여됨. 그러나 Barascou 2021의 실제 원문은 “chronic exposures to sulfoxaflor increased by 1.5- to 12-fold bee mortality, which was reduced by pollen intake”이며, “3.2배”나 “여왕 산란력 47% 감소” 같은 수치는 이 논문 어디에도 존재하지 않는다(오귀속 확정).
- Liberti et al. 2022(Nat Ecol Evol, 사회적 연결망)가 B. apis/A. kunkeei의 Bidens pilosa 독성 화밀 방어에 대해 인용되었으나, 해당 결과는 Tang et al. 2023(Environmental Microbiology 25(10):2020–2031)로 보인다.
- Mao et al. 2019(멸구 nitenpyram 저항성)가 꿀벌 미생물 생태 적응에 인용되며 “[…, 61]” 번호형 인용 잔재가 남음. 아울러 저자들은 “resile”을 동사로 반복 사용한다.
1.5 신규성과 장르
같은 그룹의 선행연구가 촘촘하다: Liu et al. 2024b(J Hazard Mater 480:135886, flumethrin이 장내 미생물·대사 교란), Liu 2024a(fluvalinate), Zhang 2025(ethiprole), Shi 2025(항생제). 또 Qi et al. 2022(Chemosphere 307:136030)는 이미 flumethrin 아치사 위해를 G. apicola와 연결했고, Dong et al. 2022(Environ Pollut 314:120340)는 거의 동일한 설계로 deltamethrin에 대해 “장내 미생물 조절과 면역 개선을 통한 저항성”(Defensin-2·Toll 상향조절)을 보고했다. 이 논문은 그 template의 반복—살충제 노출 → 시퀀싱 → 무균벌 단일정착 → AMP qPCR → 프로바이오틱 권고—에 가깝고, 증분적 성격이 강하다.
1.6 오픈사이언스
메타지놈 원자료가 공공 저장소에 기탁되지 않았고(“요청 시 제공”), Elsevier의 TDM/AI 학습 유보 조항이 붙어 있으며, 심사 주기가 매우 빠르다. 이는 재현성과 공적 지식 공유의 관점에서 짚어둘 지점이다.
Part 2 — 최근 꿀벌 장내 마이크로바이옴 연구와의 비교
2.1 Moran 계보: 상관에서 인과·기전으로
꿀벌 장은 8–9개 핵심 세균 계통(Snodgrassella alvi, Gilliamella apicola, Lactobacillus Firm-4/Firm-5, Bifidobacterium, Bartonella apis, Frischella perrara 등)으로 이루어진 단순·재현 가능한 군집이며, 바로 그 단순성 덕에 gnotobiotic 실험의 강력한 모델이다(Kwong & Moran 2016, Nat Rev Microbiol 14:374; Motta & Moran 2024, Nat Rev Microbiol 22:122). Moran 그룹의 핵심 미덕은 “관찰된 상관”을 다음 단계로 밀어붙였다는 데 있다.
면역. Kwong, Mancenido & Moran 2017(R Soc Open Sci 4:170003)은 정상 마이크로바이오타 또는 S. alvi 단독 정착이 장 조직에서 AMP(apidaecin, hymenoptaecin) 발현을 유도하고(원문: “an average 28.5-fold increase in the full microbiota-fed bees and an average 26.9-fold increase in S. alvi-fed bees in gut tissue”이며, hive-gut 접종벌에서는 hymenoptaecin도 평균 8.1-fold 증가), 표적 프로테오믹스로 혈림프·장 내강에서 apidaecin 펩타이드 자체를 검출함을 보였다—즉 전사만이 아니라 산물까지 측정했다. Horak, Leonard & Moran 2020(Proc R Soc B 287:20201184)은 살아있는 S. alvi와 열처리 S. alvi를 비교하는 결정적 대조를 두어, 살아있는 균만이 재현적 면역반응을 유도하고 병원체 Serratia marcescens 제거를 돕는다는 것을 보였다. Steele et al. 2021(Microbiol Spectr 9:e00394-21)은 마이크로바이오타가 병원체 침입을 막는다는 것을 정착 저항성 관점에서 확립했다.
해독·대사 기전(정점). Motta, Raymann & Moran 2018(PNAS 115:10305)은 glyphosate가 EPSPS 표적을 통해 장내 세균을 교란함을 보이되, class I(민감형) vs class II(비민감형) EPSPS라는 분자 수준 기전을 제시하고(원문: “whether they possessed an EPSPS of class I (sensitive to glyphosate) or class II (insensitive to glyphosate)”), 표지·재포획으로 벌통 복귀를 추적하고, glyphosate에 노출된 어린 일벌이 이후 기회 병원체 Serratia marcescens에 더 많이 죽는다는 것으로 건강 결과를 연결했다. 후속 Motta & Moran 2020(mSystems 5:e00268-20), Motta et al. 2022(Animal Microbiome 4:16, “면역 조절이상”)로 용량·시점·면역축까지 해부했다. 특히 Motta et al. 2022(eLife 11:e82595)는 식물독소 amygdalin의 숙주-미생물 공동대사를 대사체로 규명했다—”미생물이 화학물질을 어떻게 처리하는가”를 대사 수준에서 실제로 보여준 사례다.
영양·항생제. Zheng et al. 2017(PNAS 114:4775)은 마이크로바이오타가 세균 대사와 인슐린/vitellogenin 신호를 통해 체중 증가를 촉진함을 보였고(원문: “the gain was almost halved for bees deprived of gut microbiota”—무균벌의 체중 증가가 거의 절반으로 줄었음), Zheng et al. 2016(mBio 7:e01326-16)은 G. apicola 균주가 벌에 독성인 당(mannose 등)을 대사하며 균주별로 유전체 레퍼토리가 크게 다름을 보였다—균주 해상도의 전형이다. Raymann, Shaffer & Moran 2017(PLoS Biol 15:e2001861)은 항생제가 군집을 교란하고 기회감염으로 사망을 높임을 보였다. Zheng et al. 2018(Lab Animal 47:317)은 gnotobiotic 방법과 통상 대조군 설정의 표준을 제시했다.
세균·숙주 유전학과 공학. Powell et al. 2016(PNAS 113:13887)은 S. alvi의 Tn-seq로 정착 필수·유익 유전자를 계통적으로 규명했고, Leonard et al. 2018(ACS Synth Biol 7:1279)은 bee microbiome toolkit(BTK)을 구축했다. Leonard et al. 2020(Science 367:573)은 조작 S. alvi가 dsRNA를 지속 생산하여 숙주 면역/RNAi를 켜서 DWV와 Varroa를 억제함을 보였다(DWV 주입 후 dsRNA 표적군이 비표적·무 dsRNA 대조군 대비 생존이 유의하게 향상). Huang et al. 2023(PNAS 120:e2220922120)은 조작 공생균으로 Nosema ceranae를 억제했다(포자 대폭 감소, 동거벌로의 전파·정착까지 확인). 이 계열은 “미생물→숙주 유전자→표현형”을 개입으로 잇는 방식의 모범이다.
2.2 인접·중국 그룹: 강한 기전 연구는 국적을 가리지 않는다
Philipp Engel(로잔) 그룹: Kešnerová et al. 2017(PLoS Biol)의 개별 균주 대사 해부, Almasri et al. 2022(Sci Rep 12:4281)는 “핵심 미생물이 있으면 온화한 만성 농약 노출이 핵심 군집을 교란하지 않으나, 핵심 미생물이 없으면 농약이 해독계·항산화·대사를 직접 교란한다”는 결정적 대조를 보였다. Hao Zheng(중국농업대) 그룹: Zhang et al. 2022(Nat Commun 13:2037)는 마이크로바이오타가 tryptophan→indole 유도체→숙주 AhR 경로로 학습·기억을 조절함을 균주 수준에서 규명했다—강한 기전 연구가 중국 랩에서도 나온다는 명확한 증거다. 그밖에 Wu et al. 2020(Microb Biotechnol 13:1201, P450 유도), Kakumanu et al. 2016(Front Microbiol 7:1255, in-hive miticide tau-fluvalinate·coumaphos·chlorothalonil가 필드 수준에서 장 군집 교란)가 이 논문의 직접 선행 맥락이다.
프로바이오틱 회의론도 중요하다. Daisley/Reid 그룹은 Lactobacillus rhamnosus GG가 Drosophila에서 유기인계 농약을 **대사가 아니라 격리(sequester)**하여 독성을 낮춤을 보였고(Trinder et al. 2016, AEM 82:6204; Daisley et al. 2018, AEM 84:e02820-17), 상용 꿀벌 프로바이오틱의 실효성에는 강한 반증이 있다: Damico, Beasley, Greenstein & Raymann 2023(Probiotics Antimicrob Proteins, doi:10.1007/s12602-023-10203-1)의 필드 연구는 미국 최다 판매 제품 SuperDFM®-HoneyBee™(제조사 Strong Microbials)의 균이 일벌 장에서 한 번도 검출되지 않았고(원문: “the SuperDFM-Honeybee™ probiotic bacteria were never found in any of the bee gut samples, even during active treatment with the probiotic powder”) 항생제 후 회복을 앞당기지도 못했음을 보였다. 이는 이 논문 결론(“프로바이오틱 제형 권고”)이 넘어야 할 문턱을 보여준다.
2.3 초파리 병렬(에세이용 렌즈)
- Won-Jae Lee 그룹: Duox/ROS 상피 면역과 세균 유래 uracil 감지(Ha et al. 2005, Science 310:847; Lee et al. 2013, Cell 153:797). 이 논문이 SOD/CAT을 “면역”으로 묶은 대목과 직접 관련된다—장 상피의 ROS 항상성은 면역이자 산화 스트레스 축이다.
- Jones & Neish 2013(EMBO J 32:3017): 공생 젖산균이 Nox 매개 ROS로 상피 증식을 유도.
- Lemaitre 그룹 Hanson et al. 2019(eLife 8:e44341): CRISPR로 14개 AMP 유전자를 계통적으로 결실시켜 AMP의 필요성 자체를 유전학적으로 검증(특정 병원체엔 특정 AMP가 방어의 대부분을 담당). “AMP가 중요하다”를 전사 상관이 아니라 결실 표현형으로 증명하는 방식의 전형.
- para/kdr 역사: 피레스로이드 표적인 전압개폐 나트륨 통로는 Drosophila의 para(paralytic)에서 클로닝되었고(Loughney, Kreber & Ganetzky 1989, Cell 58:1143), kdr 저항성 돌연변이가 이 유전자좌에 지도화되었다. 즉 “이 독이 무엇에 작용하는가”의 분자적 답은 파리 유전학에서 나왔다.
2.4 비교 표
| 축 | 대상 논문 (Liu·Chen·Wu 2026) | Moran 계보 / 인접·중국 그룹 모범 |
|---|---|---|
| 질문 유형 | 서술적(노출→군집 변화→qPCR 상관→방어 주장) | 인과·기전(개입으로 매개 검증) |
| 대조군(통상 vs 단일정착) | 통상 군집 대조군 없음, 단일정착만; 무flumethrin 실험서 방어 결론 도출 | 통상 vs 무균 vs 단일정착 병치; 열처리 세균 대조(Horak 2020) |
| 균주 해상도 | 균주 정체·기원·유전체 미보고 | 균주 유전체·변이 레퍼토리(Zheng 2016; Powell 2016) |
| 기전 깊이(세균유전학/숙주유전학/대사체) | 없음(qPCR 5종만) | Tn-seq·조작 공생균 RNAi(Leonard 2020; Huang 2023), EPSPS class I/II(Motta 2018), amygdalin 대사체(Motta 2022 eLife) |
| 필드/벌통 검증 | 없음(케이지, 단일 시점) | 재포획·벌통 복귀(Motta 2018), 필드 프로바이오틱 검정(Damico 2023) |
| 데이터 공개 | 메타지놈 미기탁(“요청 시”), AI/TDM 유보 | 공개 accession·프로토콜 표준화(Zheng 2018) |
2.5 “미생물→면역 유전자→농약 내성”을 지지하려면
분야의 모범이 요구하는 것: (1) 매개변수에 대한 개입—Toll/IMD 또는 특정 AMP의 (조작 공생균 매개) RNAi/결실로 방어가 사라지는지; (2) 세균 쪽 개입—해당 유전자를 잃은 세균 변이체, 그리고 열처리 세균 대조군; (3) 대안 배제—체내 flumethrin 실측, 세균의 흡수 감소·격리·분해 검사, 영양/체중 축의 분리; (4) 올바른 표적 유전자—피레스로이드라면 CYP9Q1–3; (5) 균주 해상도와 통상 군집 대조; (6) 필드/벌통 검증과 데이터 공개. Woodward식 개입주의로 말하면, 이 논문은 원인 후보(미생물)에 개입했으나 제안된 매개자(면역)에는 결코 개입하지 않았다.